Nat Metab-¹³C示踪揪出癌细胞β-OHB代谢“秘密通道”
01 文章导读
酮体(Ketone bodies)是肝脏在禁食、低碳水饮食或生酮饮食条件下,由脂肪酸氧化产生的可溶性代谢物,主要包括β-羟基丁酸(β-Hydroxybutyric acid;β-OHB)、乙酰乙酸和丙酮。其中β-OHB是血液中含量最高的酮体,传统上被视为大脑、心脏和骨骼肌等重要器官在低血糖状态下的替代能源,能够“节省葡萄糖”供其他组织使用。
在经典代谢模型中,β-OHB只能进入线粒体,经3-羟基丁酸脱氢酶1(3-Hydroxybutyrate Dehydrogenase 1;BDH1)、3-酮酸辅酶A转移酶1(3-oxoacid CoA-transferase 1;OXCT1)和硫解酶转化为乙酰辅酶A(Acetyl Coenzyme A;乙酰CoA),再进入三羧酸(Tricarboxylic acid;TCA)循环供能。癌细胞身处复杂多变的肿瘤微环境,必须灵活摄取各类代谢物以支撑核苷酸、氨基酸和脂质的快速合成。近年来,科学家发现某些癌细胞也能代谢酮体,但酮体究竟如何服务于癌细胞的合成代谢需求,仍不清楚。
针对上述问题,范安德尔研究所(Van Andel Institute)的Evan C. Lien教授团队于2025年10月7日在Nat Metab.发表了题为“An alternative route for β-hydroxybutyrate metabolism supports cytosolic acetyl-CoA synthesis in cancer cells”的研究论文,通过¹³C-葡萄糖与¹³C-β-OHB同位素示踪比较、代谢流分析、CRISPR-Cas9基因敲除、细胞增殖实验及小鼠肿瘤模型等多种方法,系统追踪了β-OHB在癌细胞中的代谢流向,最终证实β-OHB不仅通过经典OXCT1依赖路线经线粒体TCA循环支持胞质乙酰CoA合成,还可通过乙酰乙酰辅酶A合成酶(Acetoacetyl-CoA synthetase;AACS)依赖的胞质非经典路线直接生成胞质乙酰CoA,并证明该代谢分流路径在肿瘤生长中具有重要生理意义。
02 研究内容及结果
1.β-OHB促进脂质饥饿癌细胞的增殖
研究团队首先在多种癌细胞系中筛选Bdh1和Oxct1的表达,发现AL1376(小鼠胰腺导管腺癌)、B16(小鼠黑色素瘤)和MIA PaCa-2(人胰腺导管腺癌)三株细胞同时高表达这两个关键酮体代谢酶。然而,β-OHB并不能挽救葡萄糖饥饿导致的增殖缺陷。进一步实验发现,在脂质耗竭培养基中,β-OHB能够显著促进上述三株细胞的增殖,而脂肪酸合酶(Fatty Acid Synthase;FASN)抑制剂GSK2194069和胆固醇合成抑制剂辛伐他汀均可阻断这一效应,提示β-OHB来源的胞质乙酰CoA主要用于脂肪酸和胆固醇合成。
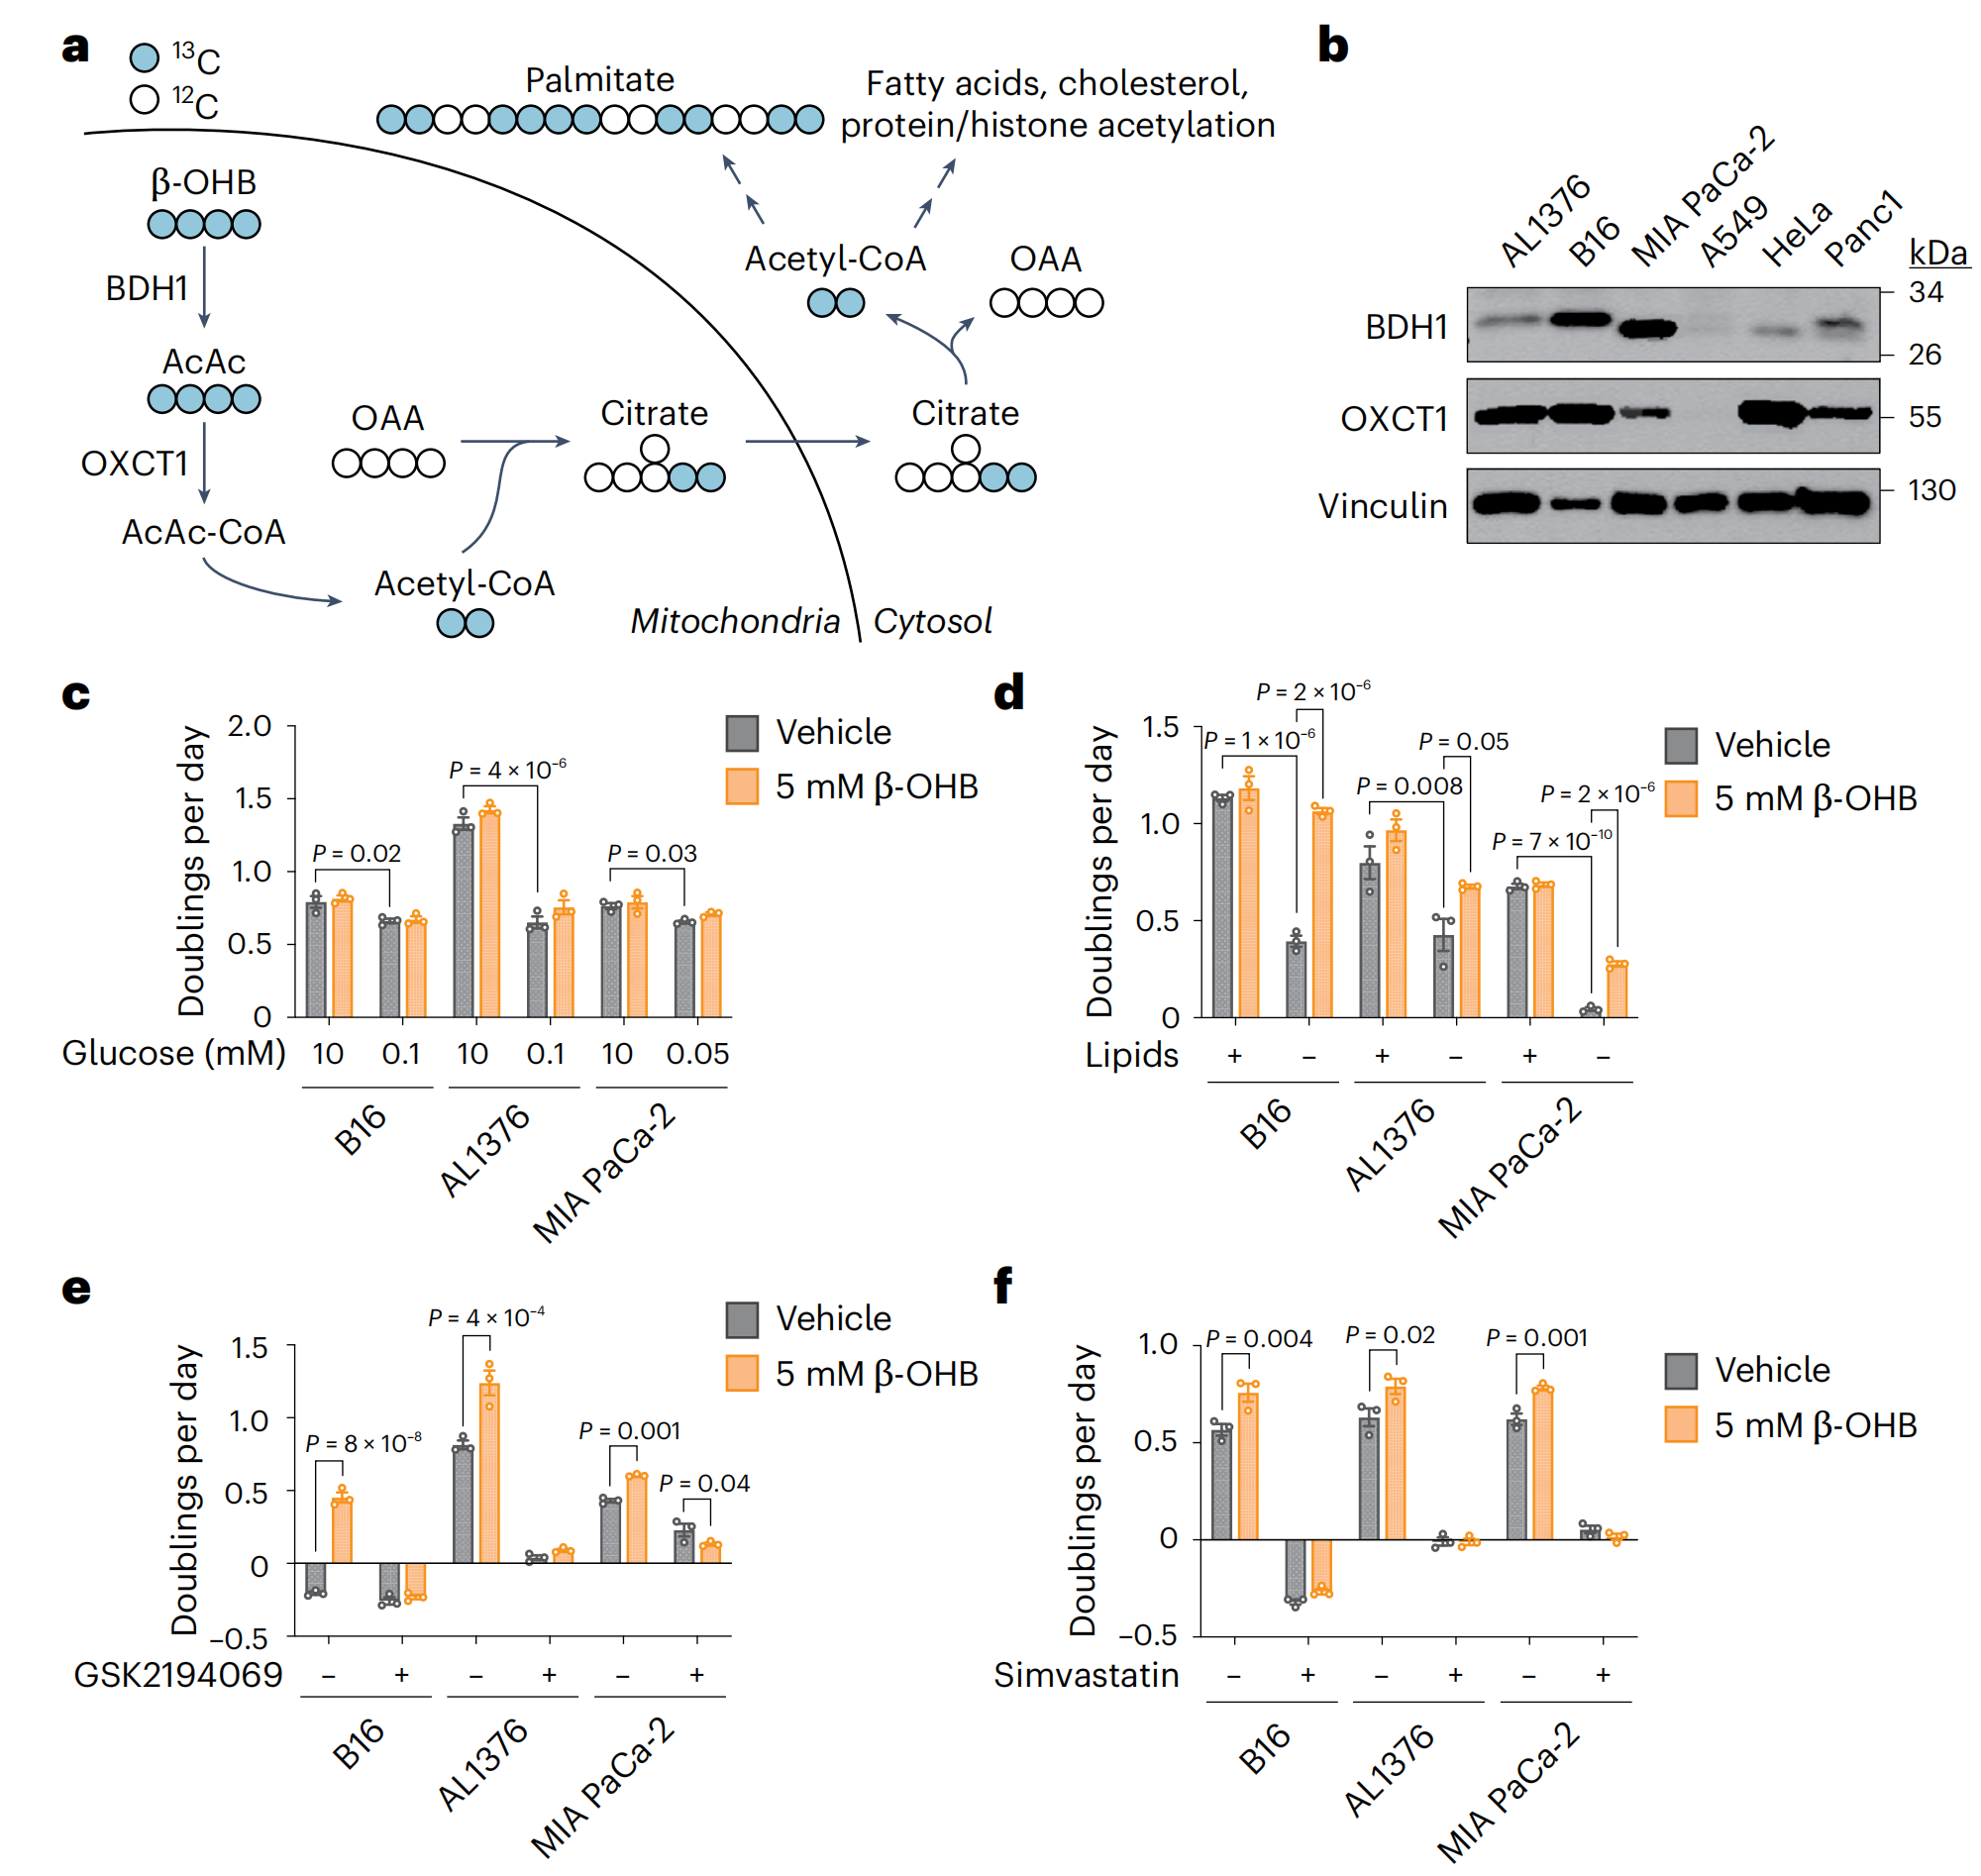
图1 β-OHB 促进脂质饥饿状态下癌细胞的增殖
2.β-OHB是胞质乙酰CoA的主要来源
为定量评估β-OHB对胞质乙酰CoA池的贡献,研究团队采用稳定同位素示踪结合同位素异构体谱分析(Isotopomer spectral analysis;ISA):用5 mM [U-¹³C]β-OHB标记细胞48小时,通过GC-MS分析棕榈酸(16:0)的质量同位素异构体分布(Mass Isotopomer Distribution;MID),并利用FAMetA(Fatty Acid Metabolic Analysis)计算胞质乙酰CoA的标记比例。结果显示,β-OHB对胞质乙酰CoA的标记比例高于对柠檬酸的标记比例,说明β-OHB更倾向于直接供给胞质乙酰CoA合成。此外,添加5 mM未标记β-OHB可显著抑制¹³C-葡萄糖对棕榈酸和胞质乙酰CoA的标记,且这种抑制呈浓度依赖性(1 mM即可显著抑制),表明β-OHB是胞质乙酰CoA的主要来源,即使在葡萄糖充足时也是如此。
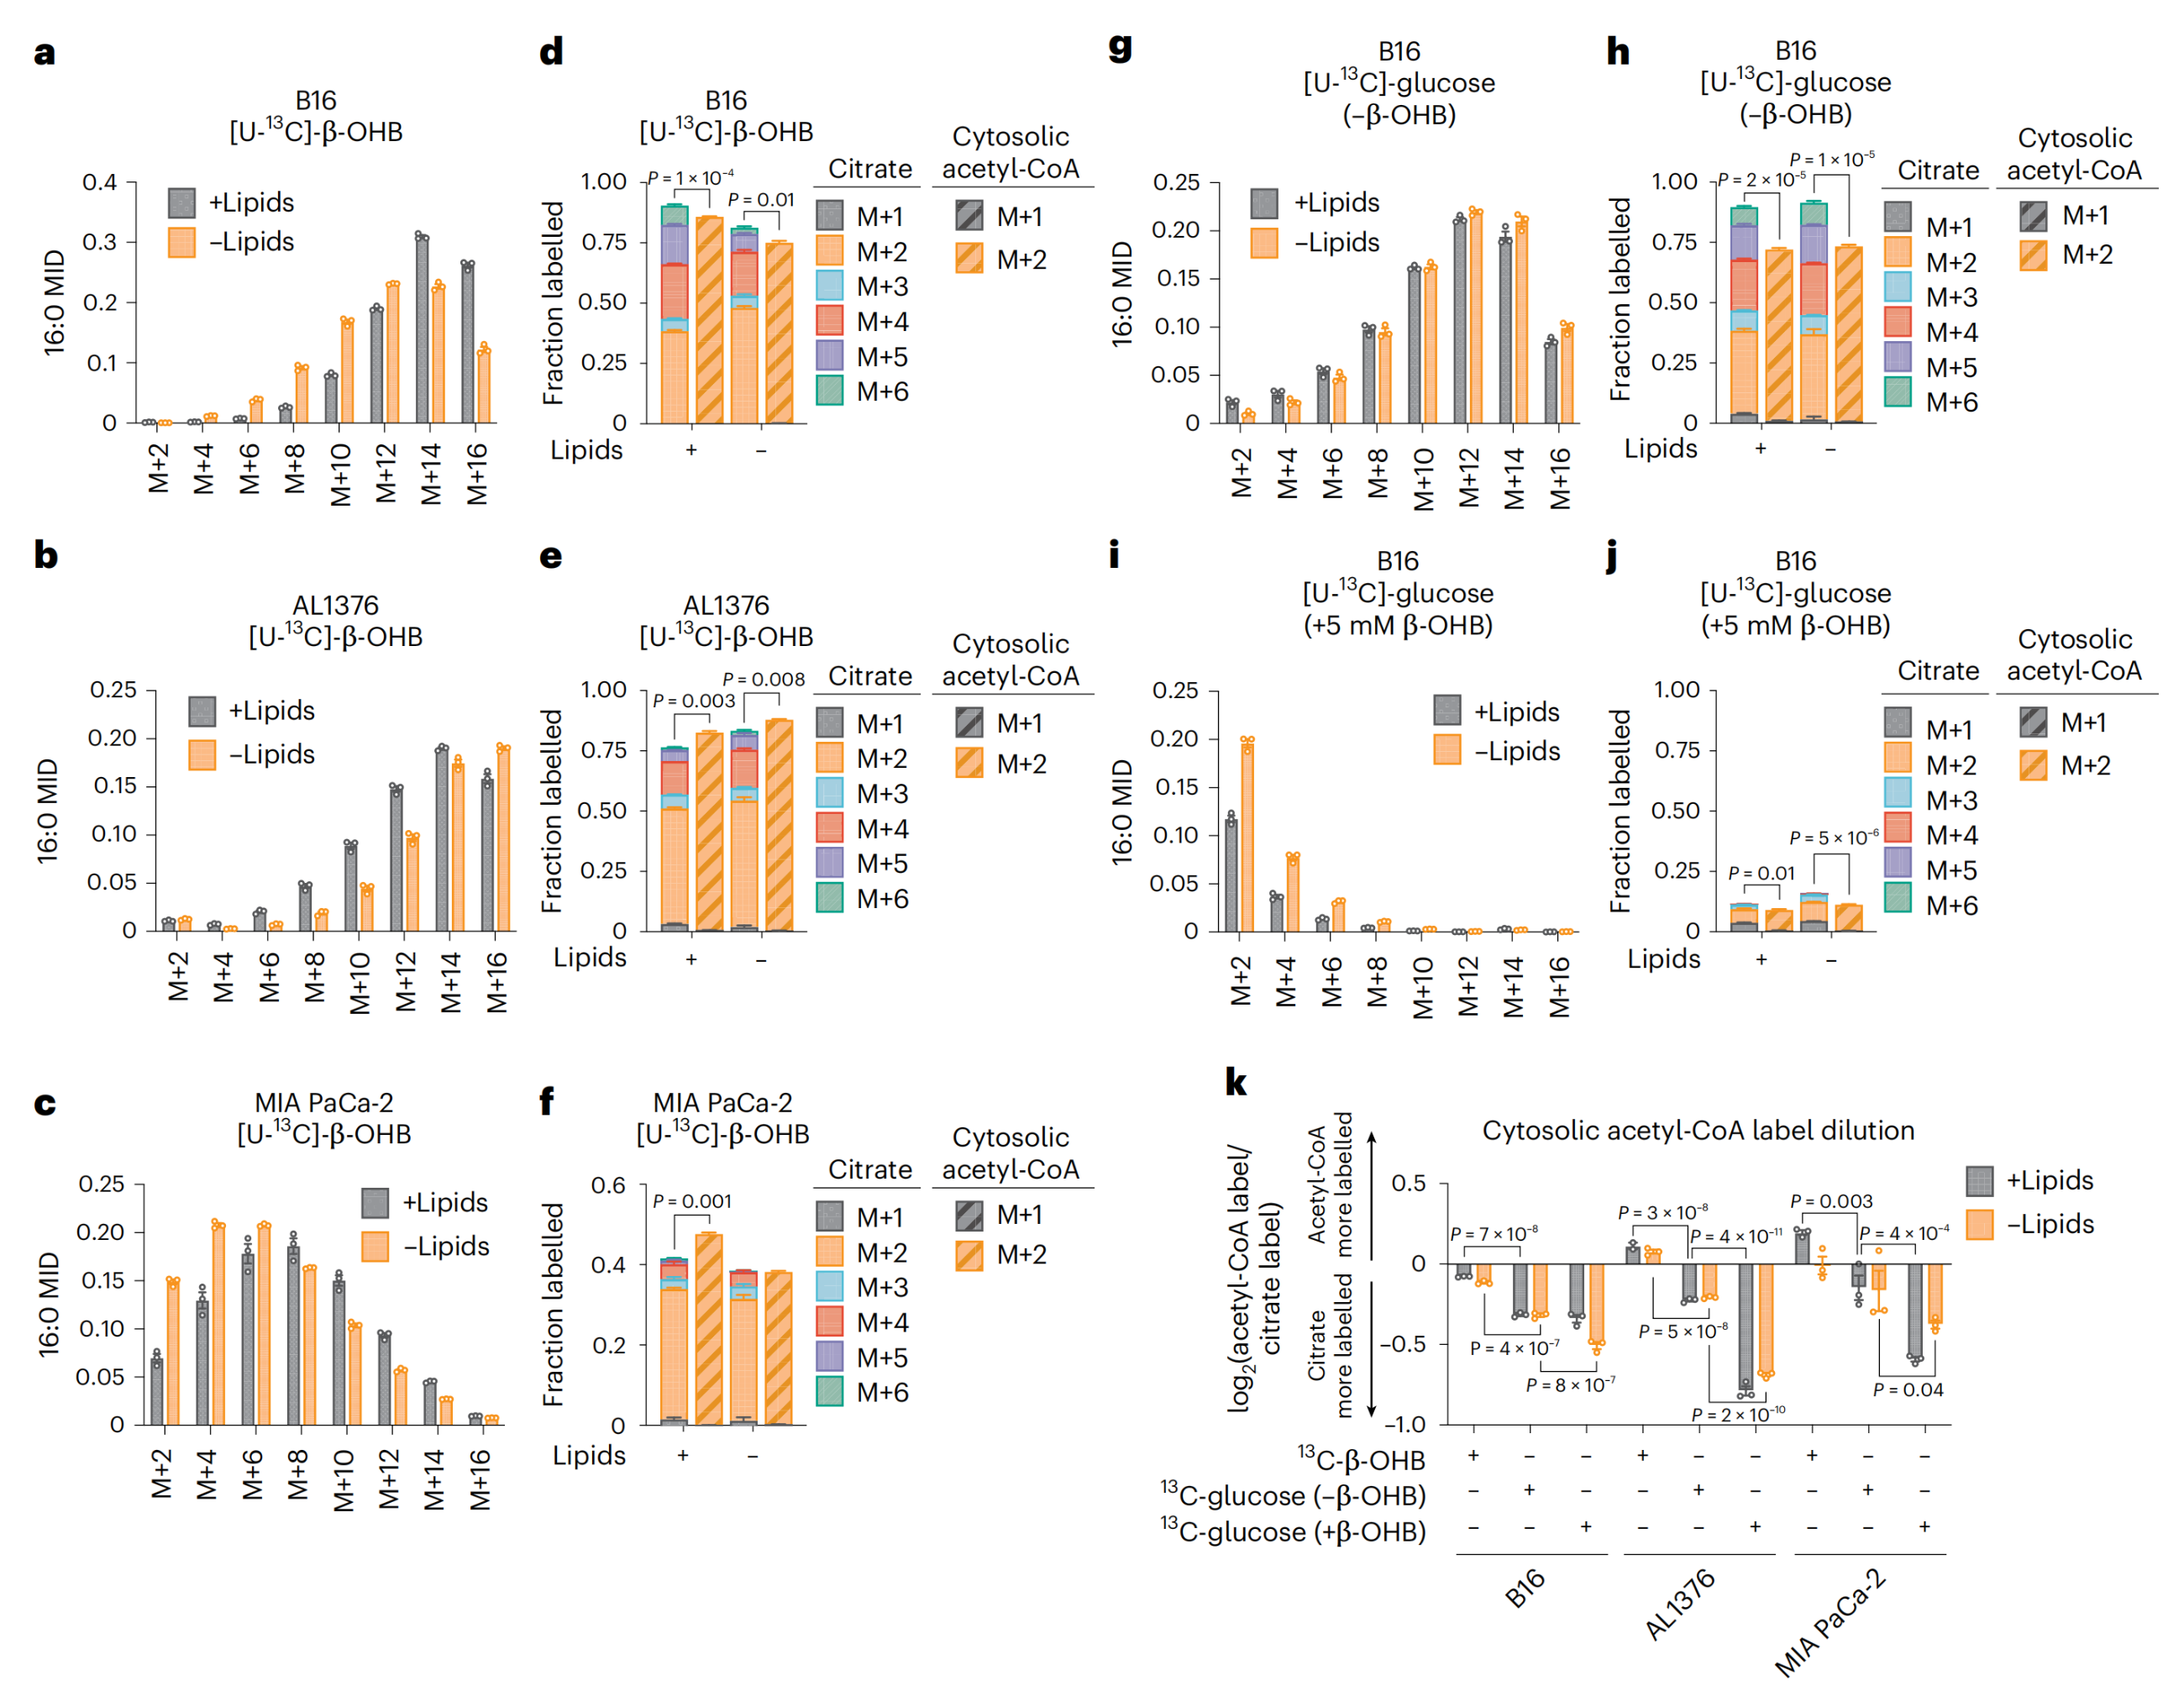
图2 β-OHB是胞质乙酰CoA的主要来源
3.β-OHB通过不依赖柠檬酸的Aacs路线生成胞质乙酰CoA
为验证β-OHB是否绕过线粒体TCA循环直接生成胞质乙酰CoA,研究团队利用CRISPR-Cas9分别敲除Bdh1、Oxct1和Aacs,并在脂质耗竭培养基中用[U-¹³C]β-OHB标记。结果显示:敲除Bdh1或Oxct1后,柠檬酸标记显著下降(证实线粒体氧化受阻),但胞质乙酰CoA和棕榈酸的标记仅部分降低;而敲除Aacs后,胞质乙酰CoA和棕榈酸标记同样显著下降,但柠檬酸标记不受影响。双敲除Oxct1/Aacs则导致胞质乙酰CoA标记几乎完全丧失。回补实验进一步证实,重新表达相应基因可恢复标记。这些结果证明,β-OHB可通过Oxct1依赖的线粒体柠檬酸路线和Aacs依赖的胞质非经典路线双途径生成胞质乙酰CoA。
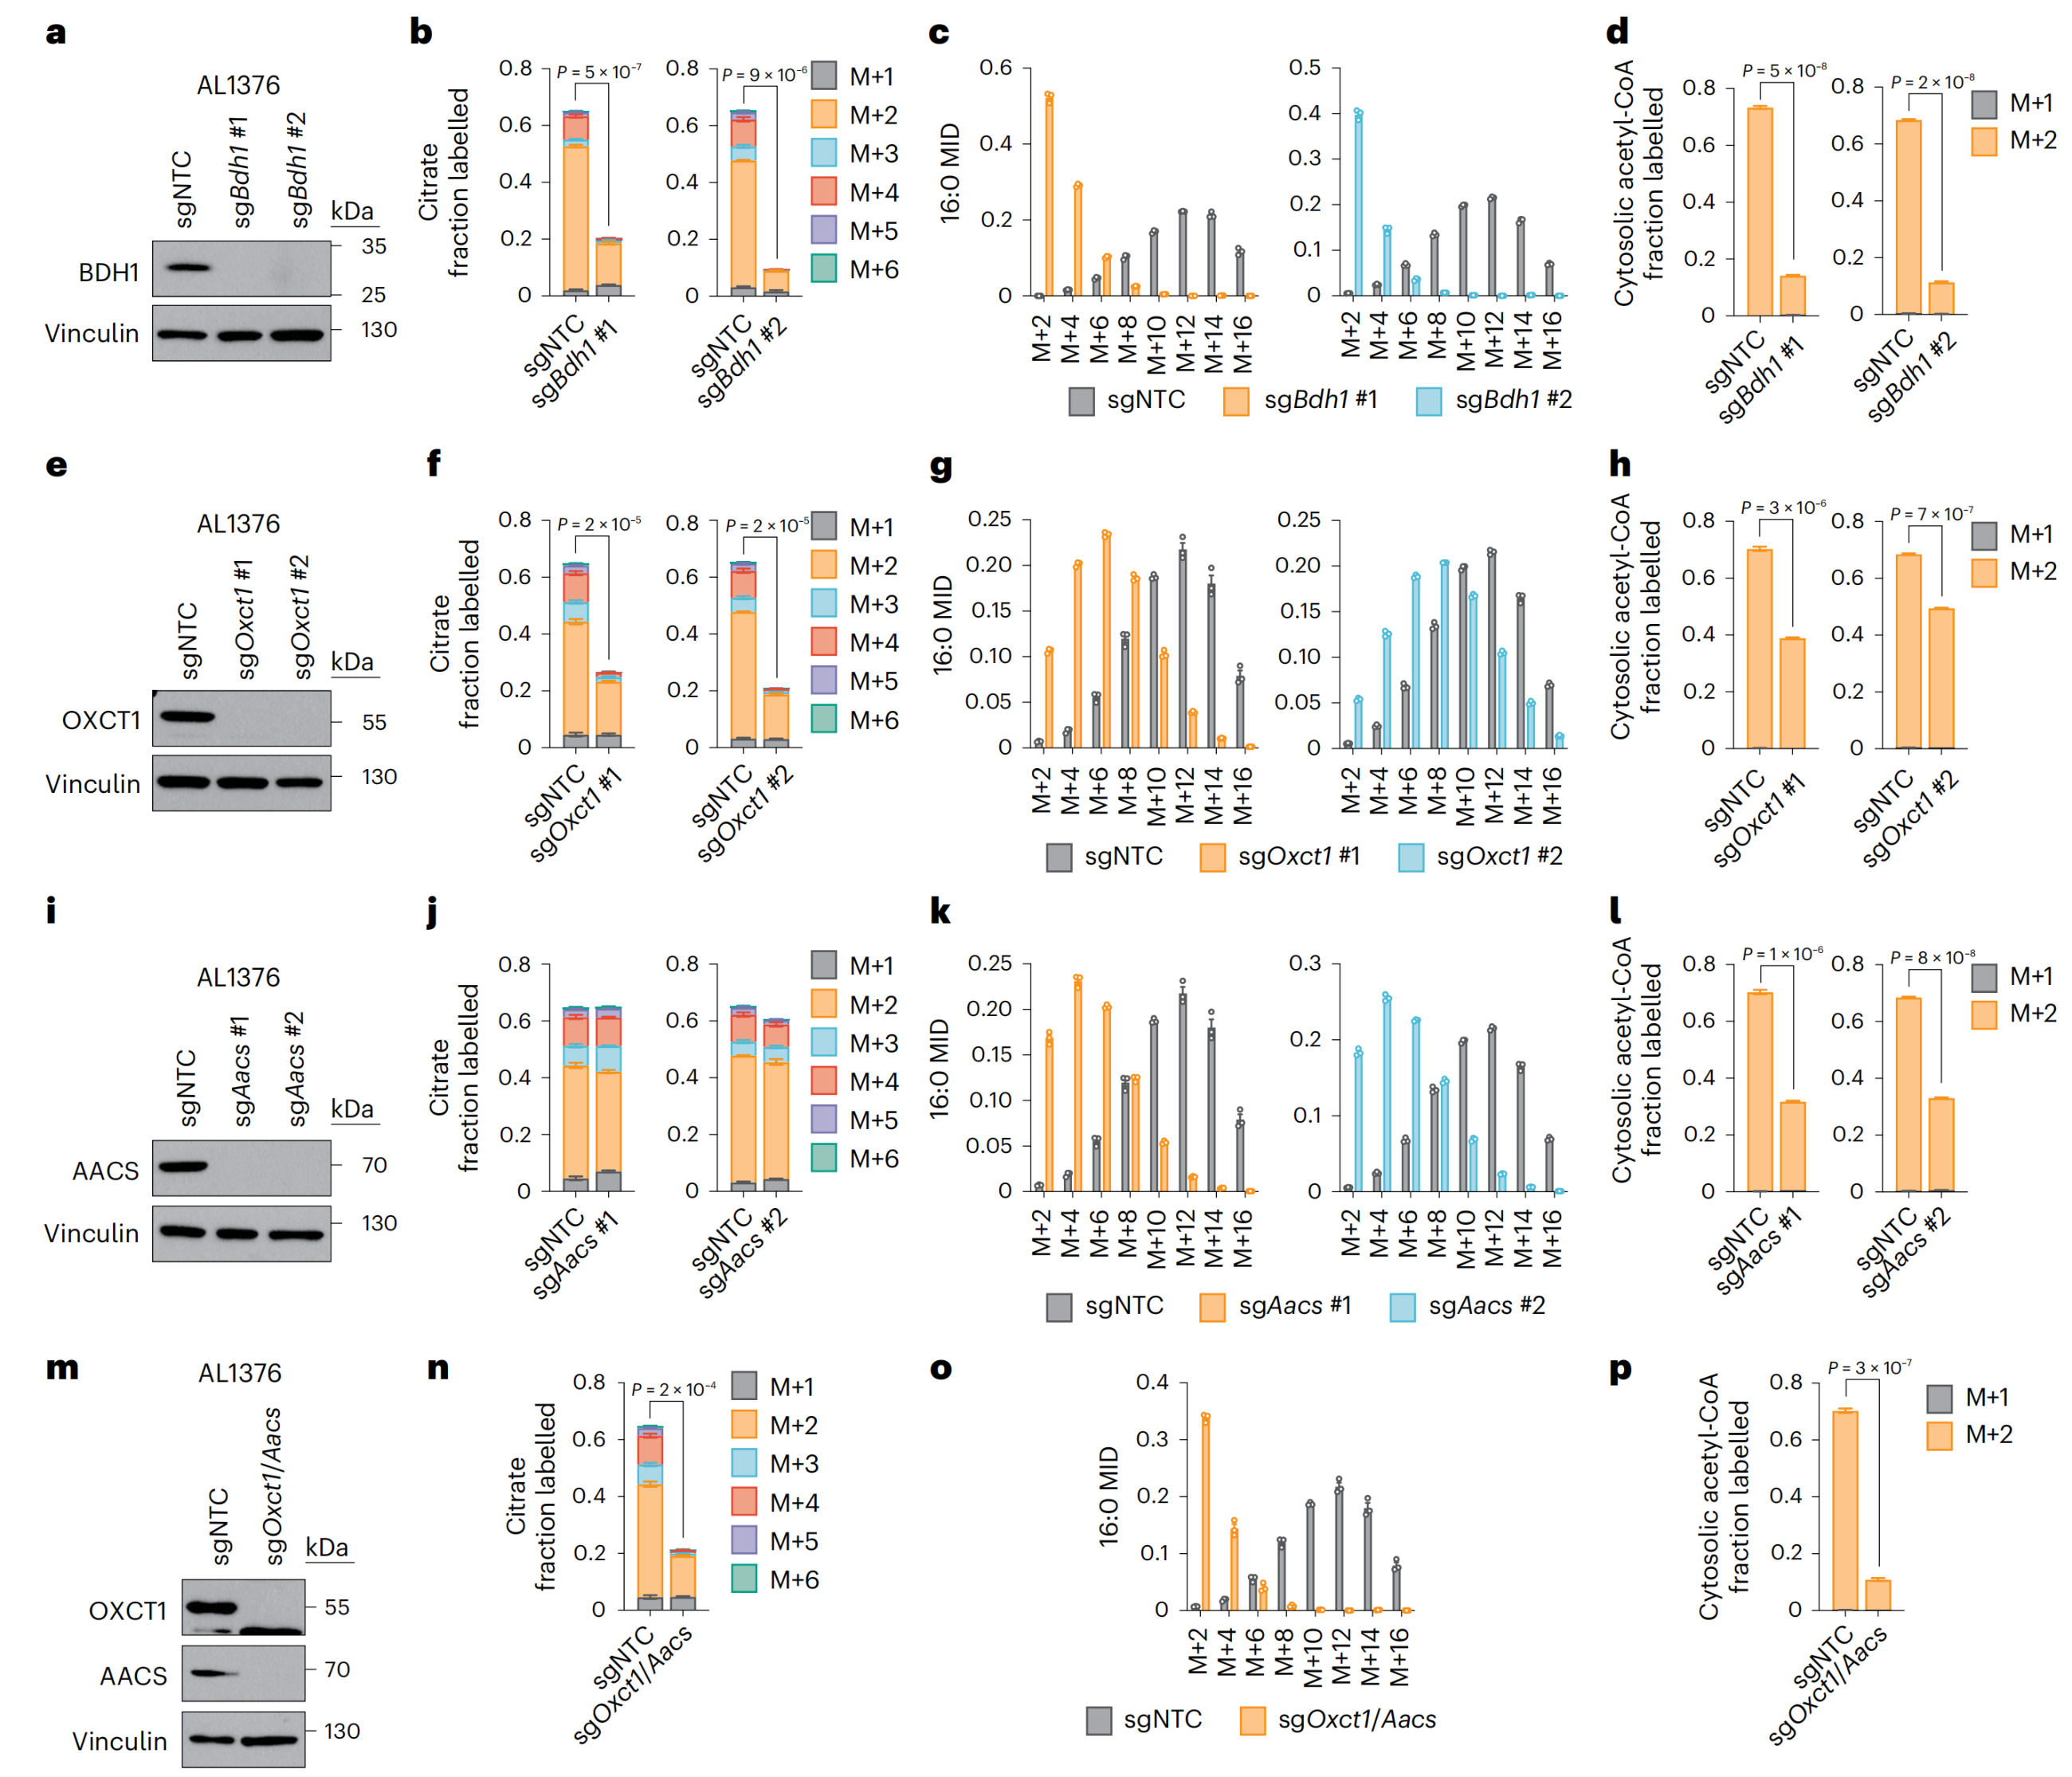
图 3 β-OHB可通过一条不依赖柠檬酸、但需要Aacs参与的途径,促进胞质内乙酰CoA的生成
4.两条路线在体内肿瘤中均发挥作用
研究团队构建了B16和AL1376皮下及原位肿瘤模型,对荷瘤小鼠禁食16小时后尾静脉输注[U-¹³C]β-OHB(推注478 mg/kg后以0.05 μl/min/g持续输注6.5小时)。肿瘤内代谢物分析显示:敲除Bdh1对棕榈酸MID影响较小,可能因循环乙酰乙酸可绕过Bdh1或Bdh2代偿;而敲除Oxct1或Aacs均导致棕榈酸MID左移、胞质乙酰CoA标记下降;双敲除Oxct1/Aacs效果最强,几乎完全阻断胞质乙酰CoA标记。此外,Aacs路线来源的乙酰CoA似乎优先用于多不饱和脂肪酸(Polyunsaturated Fatty Acid;PUFA)延伸。这些结果证实两条路线在体内肿瘤中均贡献于胞质乙酰CoA合成。
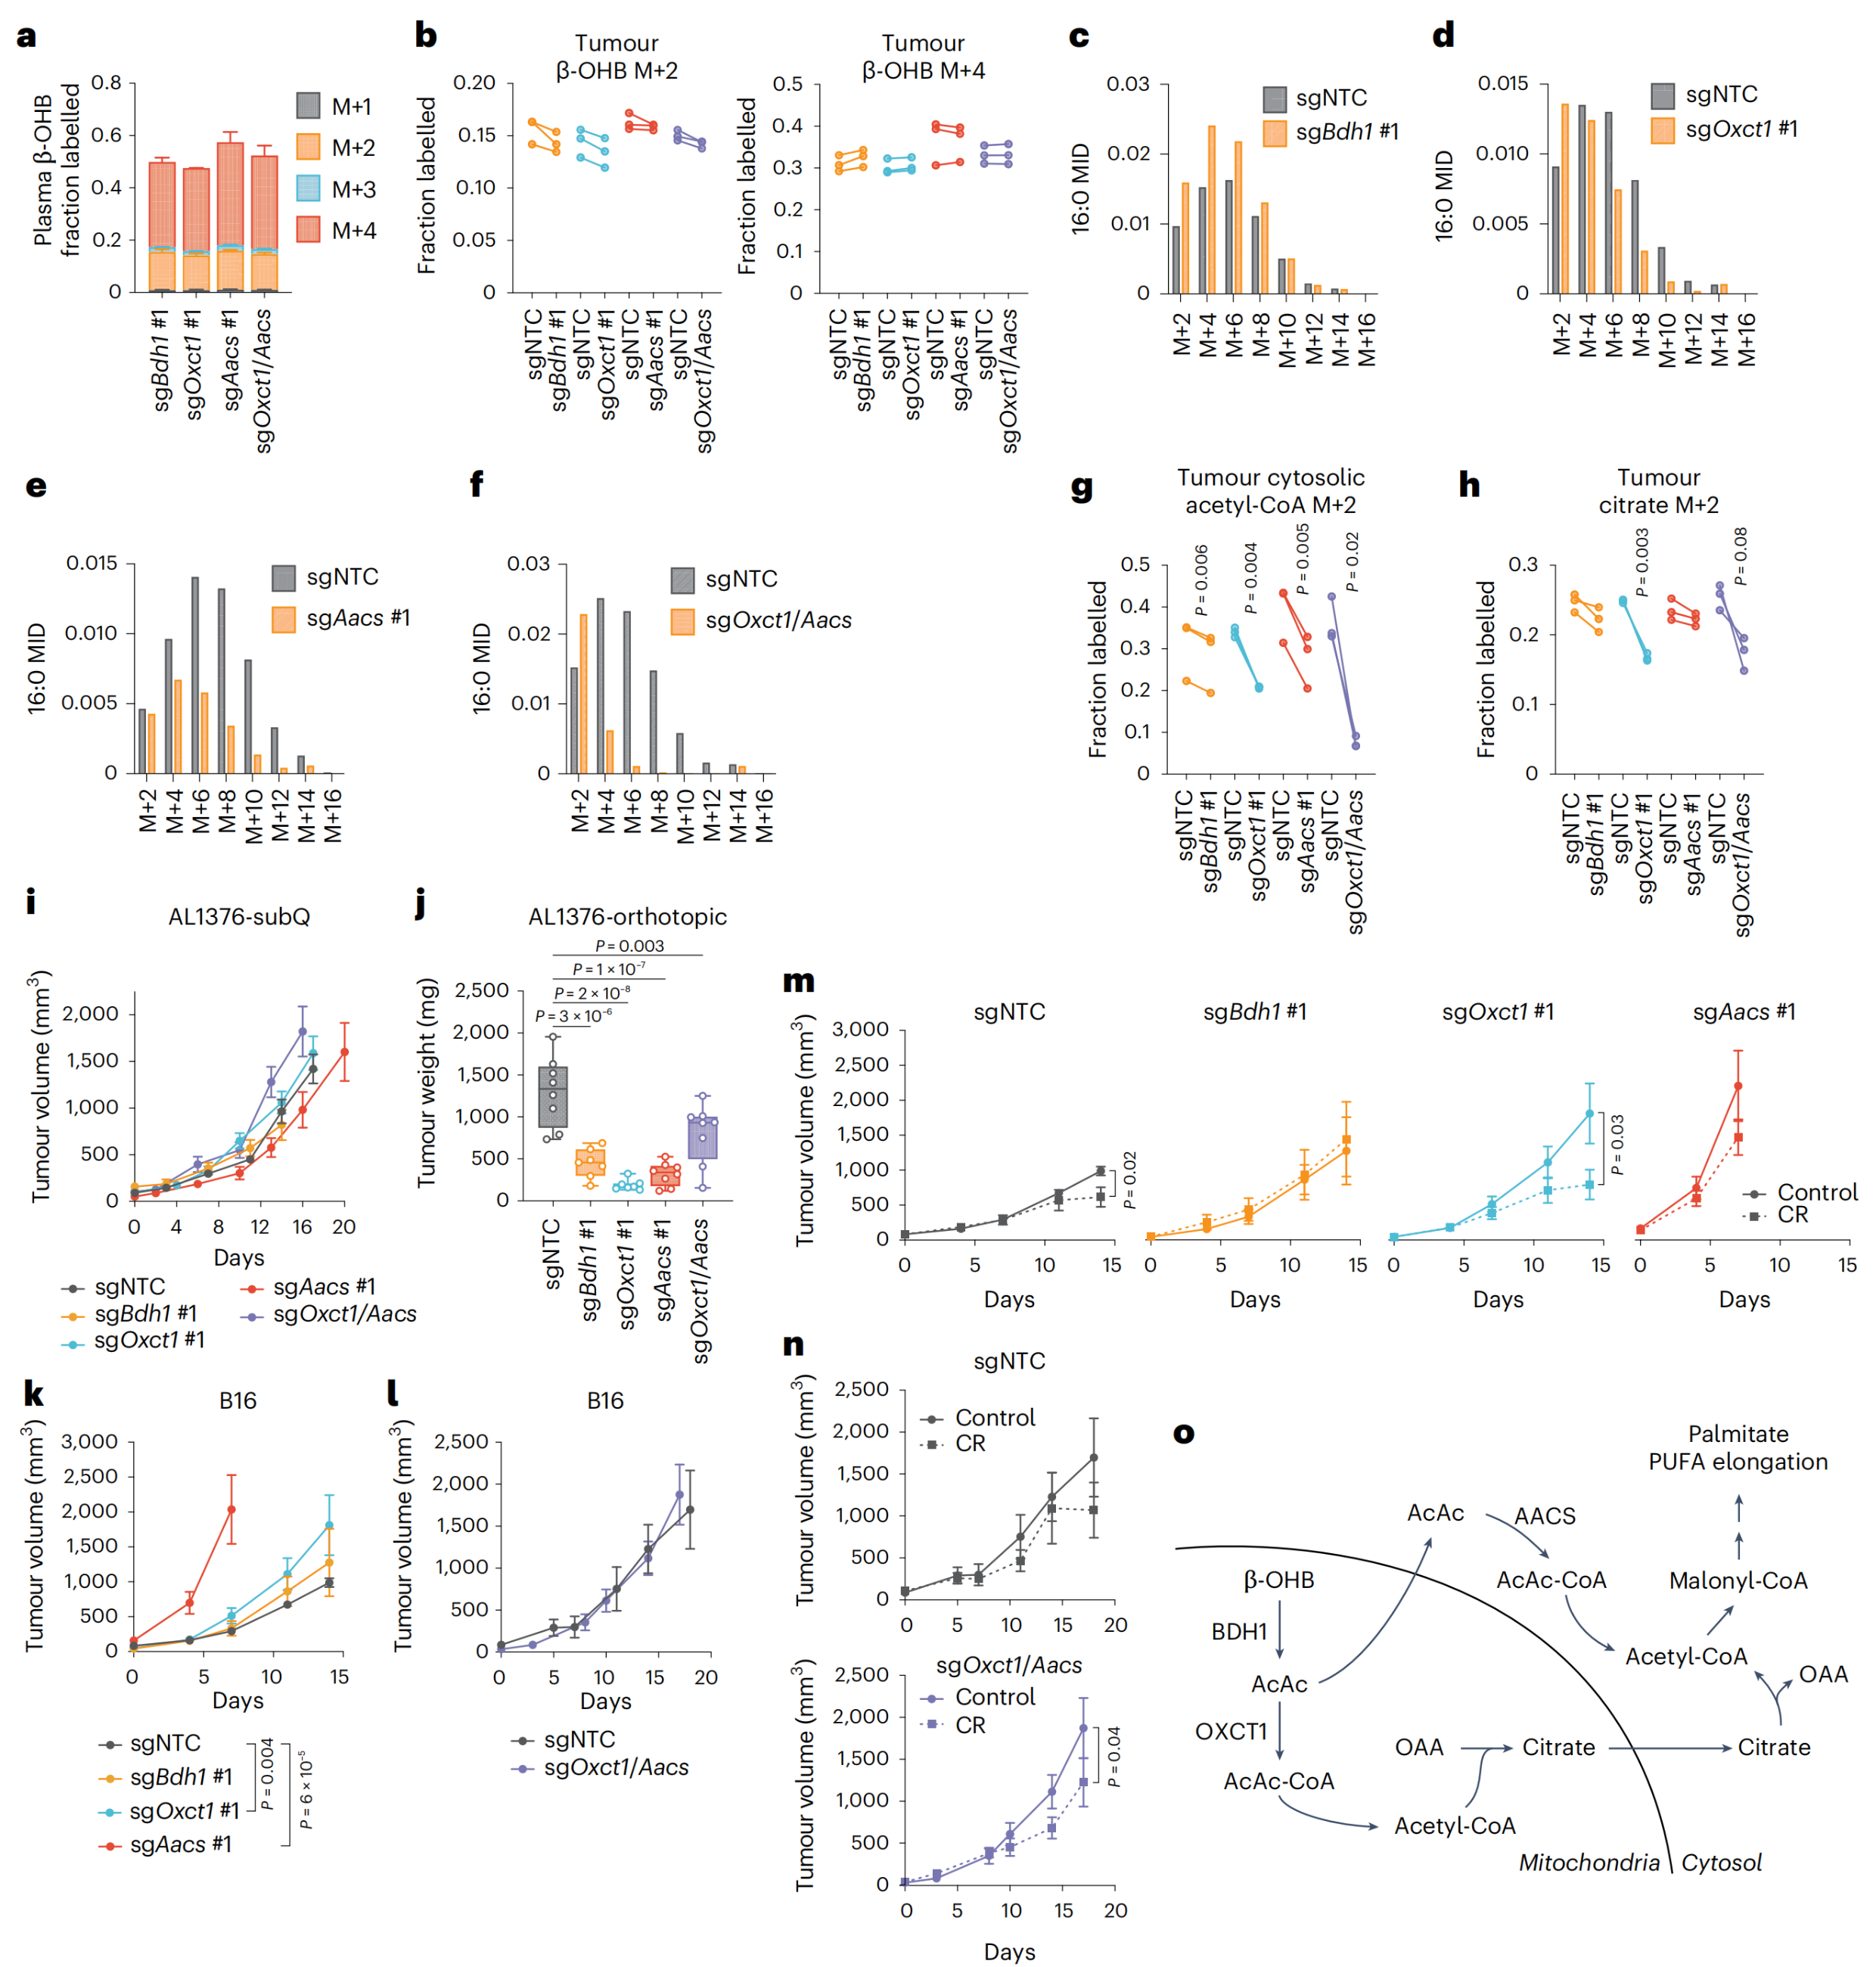
图 4 β-OHB代谢在体内参与胞质乙酰CoA的合成,并通过Oxct1与Aacs两条通路促进肿瘤生长
5.酮体代谢支持肿瘤生长
在AL1376原位胰腺肿瘤模型中,敲除Bdh1、Oxct1、Aacs或Oxct1/Aacs均显著抑制肿瘤生长,而皮下肿瘤中无此效应,提示胰腺微环境可能使胰腺导管腺癌对酮体代谢产生依赖。在B16皮下肿瘤中,敲除酮体代谢基因不影响常规饮食下肿瘤生长,但在热量限制(CR)饮食条件下,敲除Oxct1或Oxct1/Aacs显著抑制肿瘤生长,而敲除Bdh1无此效应——这与各基因敲除对胞质乙酰CoA标记的影响程度一致。结果表明,酮体代谢(包括Aacs依赖的非经典路线)在特定生理环境(如热量限制)下对肿瘤生长具有重要支持作用。
03 研究结论
本研究揭示了一条非经典的β-OHB代谢路径:除了经典的Oxct1依赖路径外,β-OHB衍生的乙酰乙酸还可被转运至胞质,经Aacs和胞质硫解酶直接转化为胞质乙酰辅酶A,从而绕过线粒体氧化。两条路径的相对贡献具有细胞类型依赖性。体内实验表明,酮体代谢(包括Aacs依赖的非经典路径)可在特定生理环境下支持肿瘤生长。β-OHB的这一特征使其区别于葡萄糖和谷氨酰胺,而更类似于乙酸,能够直接为胞质乙酰辅酶A的合成提供碳源,为未来研究提供重要支持,以更深入地阐明酮体代谢如何影响多种下游细胞过程,进而调控癌症进展。