基于INST-MFA的¹³CO₂标记解析:乙酸盐抑制光合却加速衣藻混合营养生长的代谢重编程机制
01 文章导读
藻类凭借其高效的光合碳同化能力成为极具前景的可再生燃料及原料来源。然而,调控藻类生长与生物质组成的碳分配策略目前尚未得到充分阐明。长期以来,对莱茵衣藻(Chlamydomonas reinhardtii)混合营养代谢的认知依赖通量平衡分析(FBA)模型,其核心假设为外源乙酸盐经糖异生途径合成淀粉与蔗糖,即混合营养实质上是异养暗代谢与自养光代谢的并行叠加。但FBA难以准确量化并行代谢途径的通量,未纳入酶反应可逆性,且其依赖“最大化生长速率”等预设目标,过度简化了代谢低效与生物量周转等现实约束。针对上述问题,Somnath Koley团队于2026年1月22日在Proc Natl Acad Sci U S A.发表了题为“Metabolic rewiring and biomass redistribution enable optimized mixotrophic growth in Chlamydomonas”的研究论文,采用非标记乙酸盐稀释结合动态13CO2标记策略,开展同位素非稳态代谢通量分析(INST-MFA),整合转录组、蛋白质组与代谢组数据,系统比较衣藻自养与混合营养状态下的碳通量图谱。该研究不仅修正了对混合营养代谢的长期误解,也为“乙酸盐存在下光合通量降低而生长速率提升”的表观悖论提供了机制性解释,从而为藻类生物技术与光合代谢工程奠定了基于实证通量的理论框架。
02 研究内容及结果
1. 瞬时13CO₂标记实现培养物无扰动状态下的代谢通量探测
该研究搭建了一套恒化培养系统,使混合营养组(Tris-乙酸盐-磷酸盐培养基)与自养组(Tris-磷酸盐培养基)在相同光强和营养物质(除乙酸盐外)水平下进行培养。研究发现,混合营养组倍增时间为11.1 h,显著短于自养组的14.6 h(比生长速率分别为0.062 h-1和0.048 h-1),证实乙酸盐显著促进增殖。通过碳分布含量测定结果显示,自养组蛋白质占干重67%,混合营养组为58%,脂质和淀粉含量两组相近。为确认不同生长条件下的总蛋白质含量差异并非源于样本变异或与总体生长速率相关,作者增设1% CO2自养对照后(生长速率居中)发现结果与先前一致,表明蛋白差异与相对生长速率无关。由于蛋白质合成耗能最高,混合营养组蛋白占比降低意味着乙酸盐存在下细胞所承受的合成代谢负担显著减轻。
研究采用13CO2的合成空气进行同位素标记,通过监测13C数据间接推算未标记乙酸盐的碳通量。两组间的标记差异,综合反映了乙酸盐对13CO2的稀释效应、混合营养组生长速率更快且光合碳同化作用减弱,以及乙酸盐分解代谢所释放CO2的再固定。作者将生物量组成、生长速率及同位素标记数据输入INCA平台进行INST-MFA分析,通量值经重新缩放后,实现了两种营养条件下碳流分配的直接定量比较。
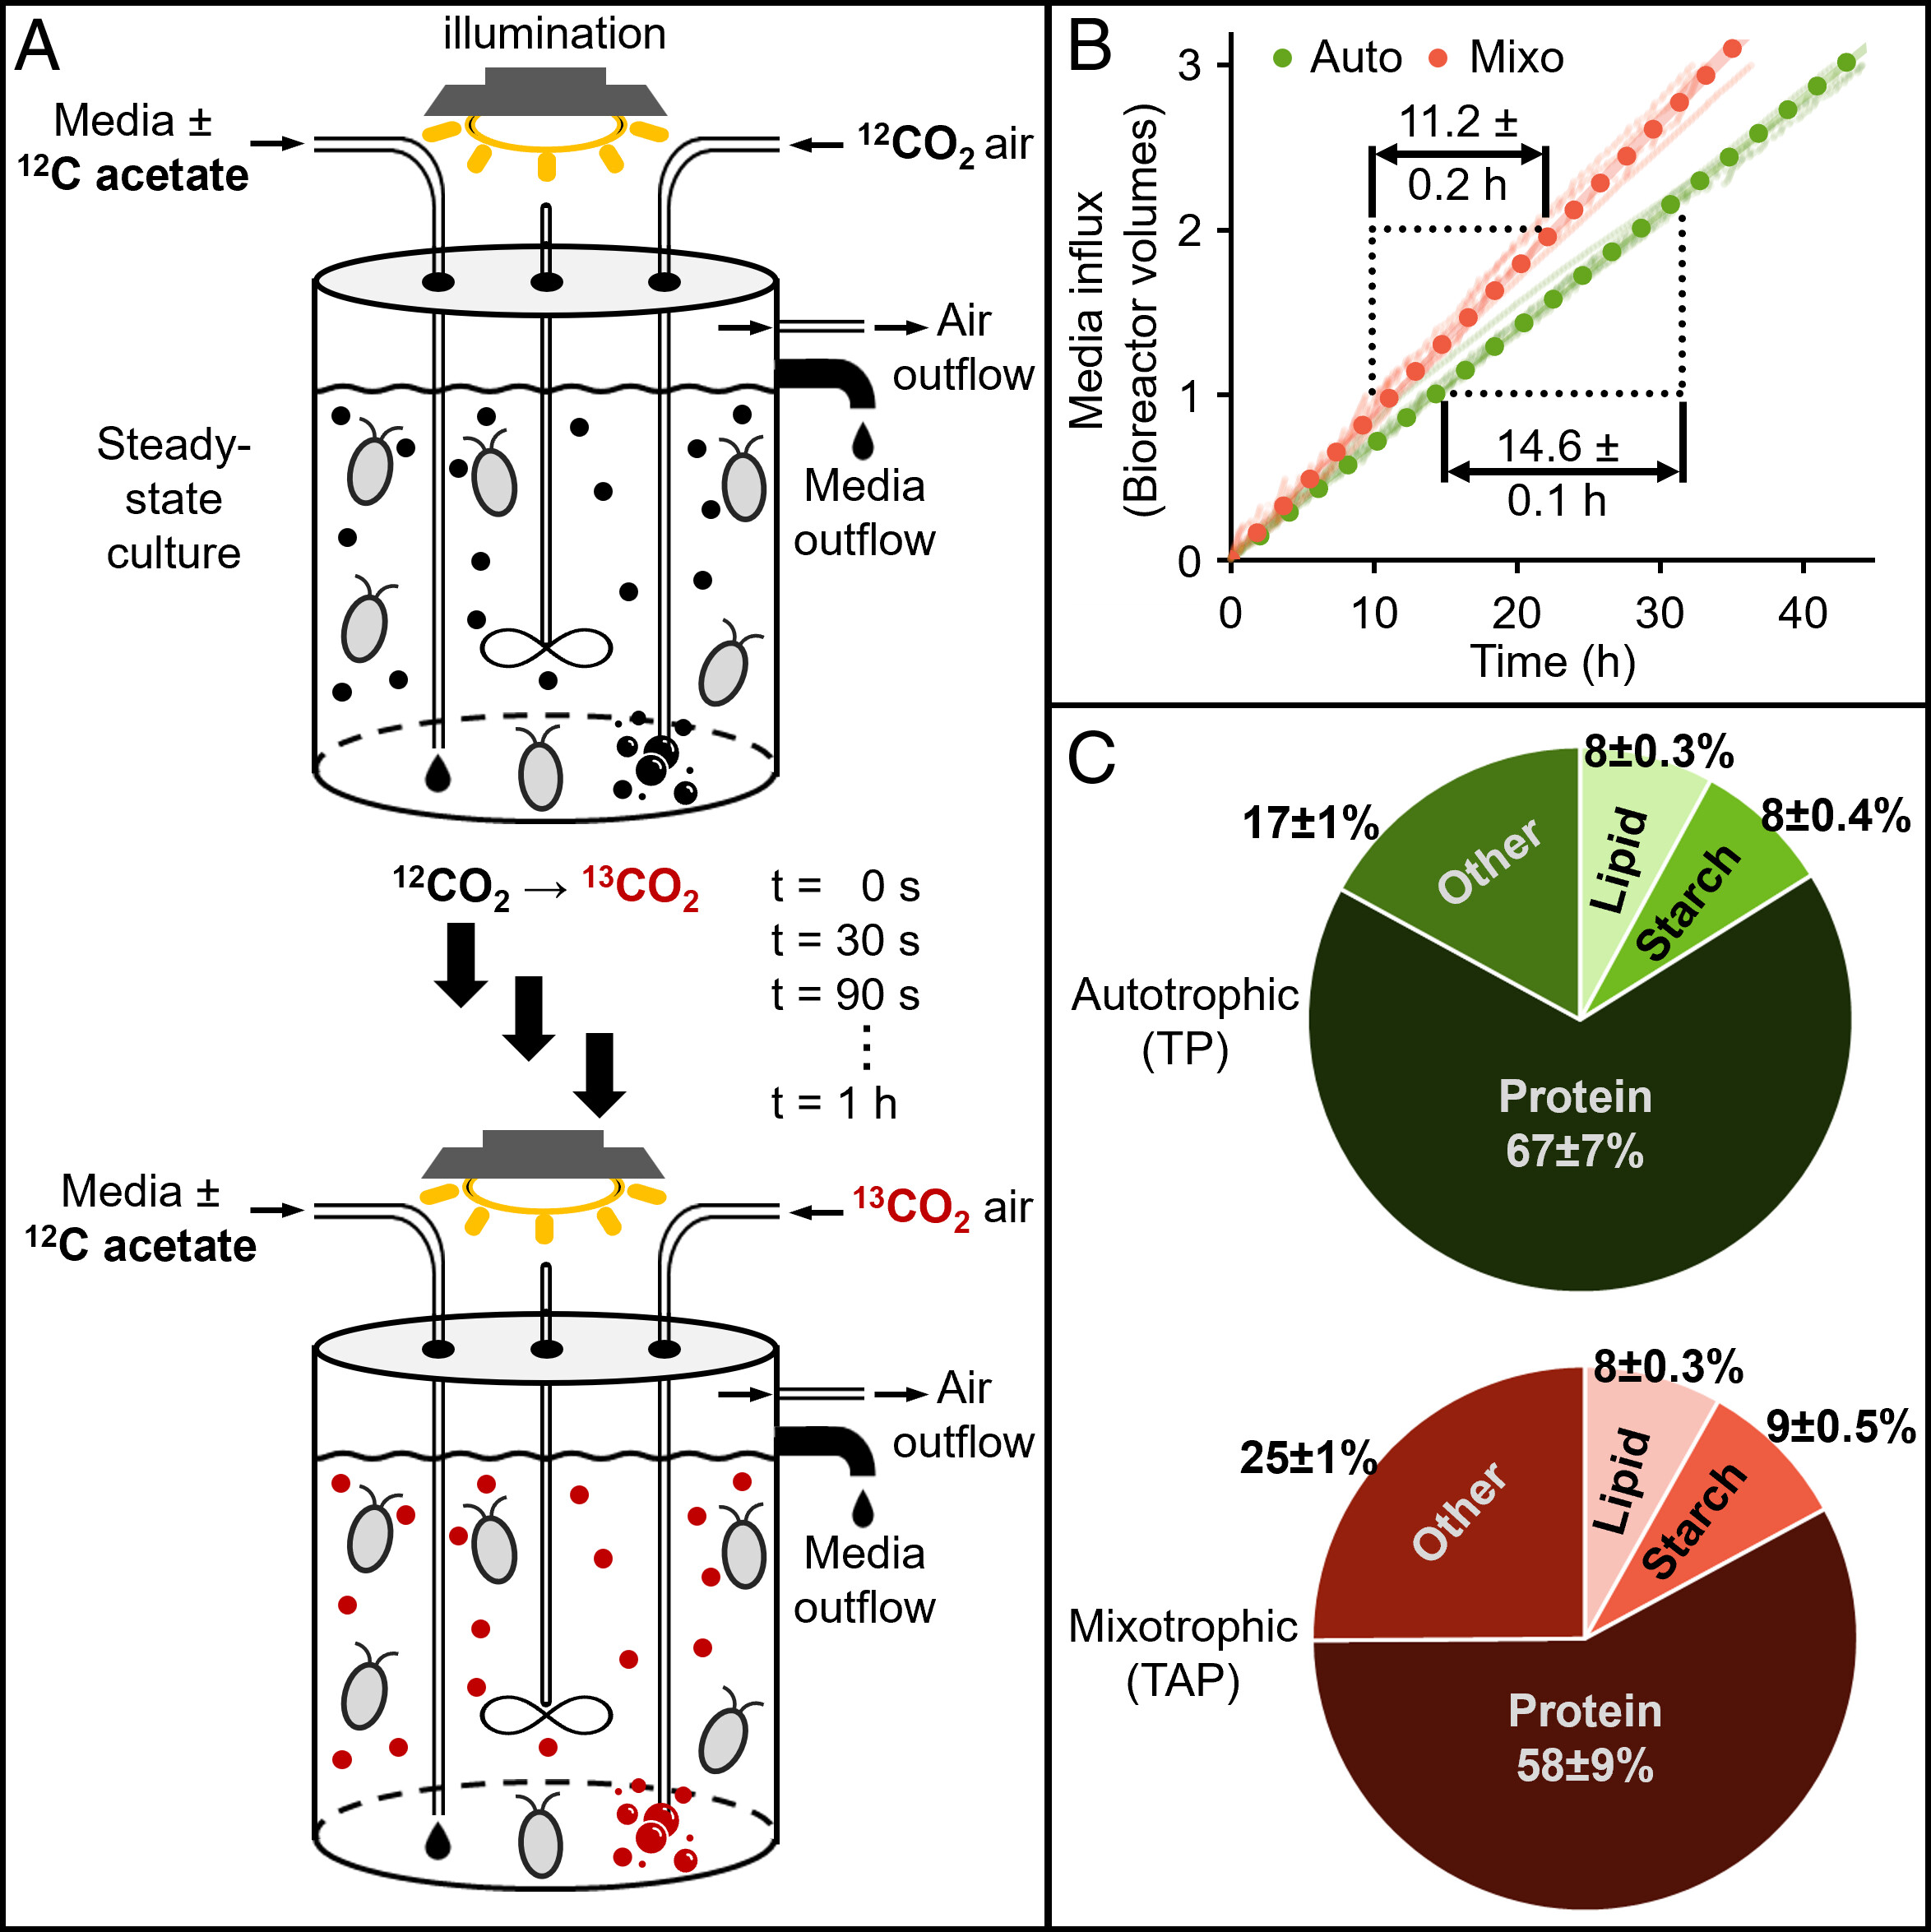
图1. 同位素添加及生长速率测定实验装置示意图
2. 乙酸盐经乙醛酸旁路重塑TCA循环,而非激活糖异生
自养与混合营养代谢间最显著的差异,体现在碳通过有机酸途径合成氨基酸和ATP的过程中。混合营养下,完整的TCA循环与乙醛酸循环协同运作,用于合成谷氨酸和天冬氨酸家族氨基酸;自养条件下TCA途径则非循环——磷酸烯醇式丙酮酸(PEP)可转化为草酰乙酸(OAA)或经丙酮酸和乙酰-CoA生成柠檬酸,进而转化为α-酮戊二酸及谷氨酸家族氨基酸,但无法检测到从α-酮戊二酸到琥珀酸的代谢通量,TCA循环未能闭环。因此,自养ATP主要来自光合作用,而非线粒体氧化磷酸化途径。相比之下,混合营养下线粒体代谢通量更高,TCA循环产生的ATP多出29%。
研究发现,混合营养下乙酸盐来源的碳有60%进入TCA衍生产物。1 h时,谷氨酸标记程度比自养低59%,表明未标记乙酸盐提供了α-酮戊二酸衍生氨基酸(谷氨酸、谷氨酰胺、脯氨酸和精氨酸)的大部分碳骨架;降低了草酰乙酸衍生氨基酸(49%),这源于磷酸烯醇式丙酮酸羧化酶(PEPC)活性向OAA池贡献了部分13C。
自养条件下乙醛酸循环不活跃,但混合营养下50%的异柠檬酸经乙醛酸旁路分流从而绕过TCA中释放CO2的步骤,因此乙醛酸循环分别贡献了琥珀酸和苹果酸中68%和78%的碳,且组学数据也显示乙醛酸旁路标志酶及糖异生标志酶--苹果酸合酶和异柠檬酸裂解酶在混合营养下丰度显著升高。
乙醛酸循环可为衣藻的糖异生提供碳源,与自养相比,混合营养下磷酸烯醇式丙酮酸羧激酶(PEPCK,糖异生标志酶)的转录本和蛋白质丰度都更高,但糖异生通量在两种条件下均未检测到,净通量方向始终为PEP→OAA。标记数据证实,PEP来源于卡尔文-本森循环(Calvin-Benson Cycle,CBC)生成的磷酸甘油酸,而非PEPCK活性。作者推测,光照下PEPCK可能通过翻译后修饰被抑制,仅在严格异养或暗期需要合成己糖时才激活。
此外,混合营养下胞质苹果酸酶(MME2,衣藻中含量最丰富的苹果酸酶亚型之一)将线粒体来源的苹果酸转化为丙酮酸,导致其标记程度低于自养;而自养细胞缺乏该活性,苹果酸在叶绿体中由MME3催化。
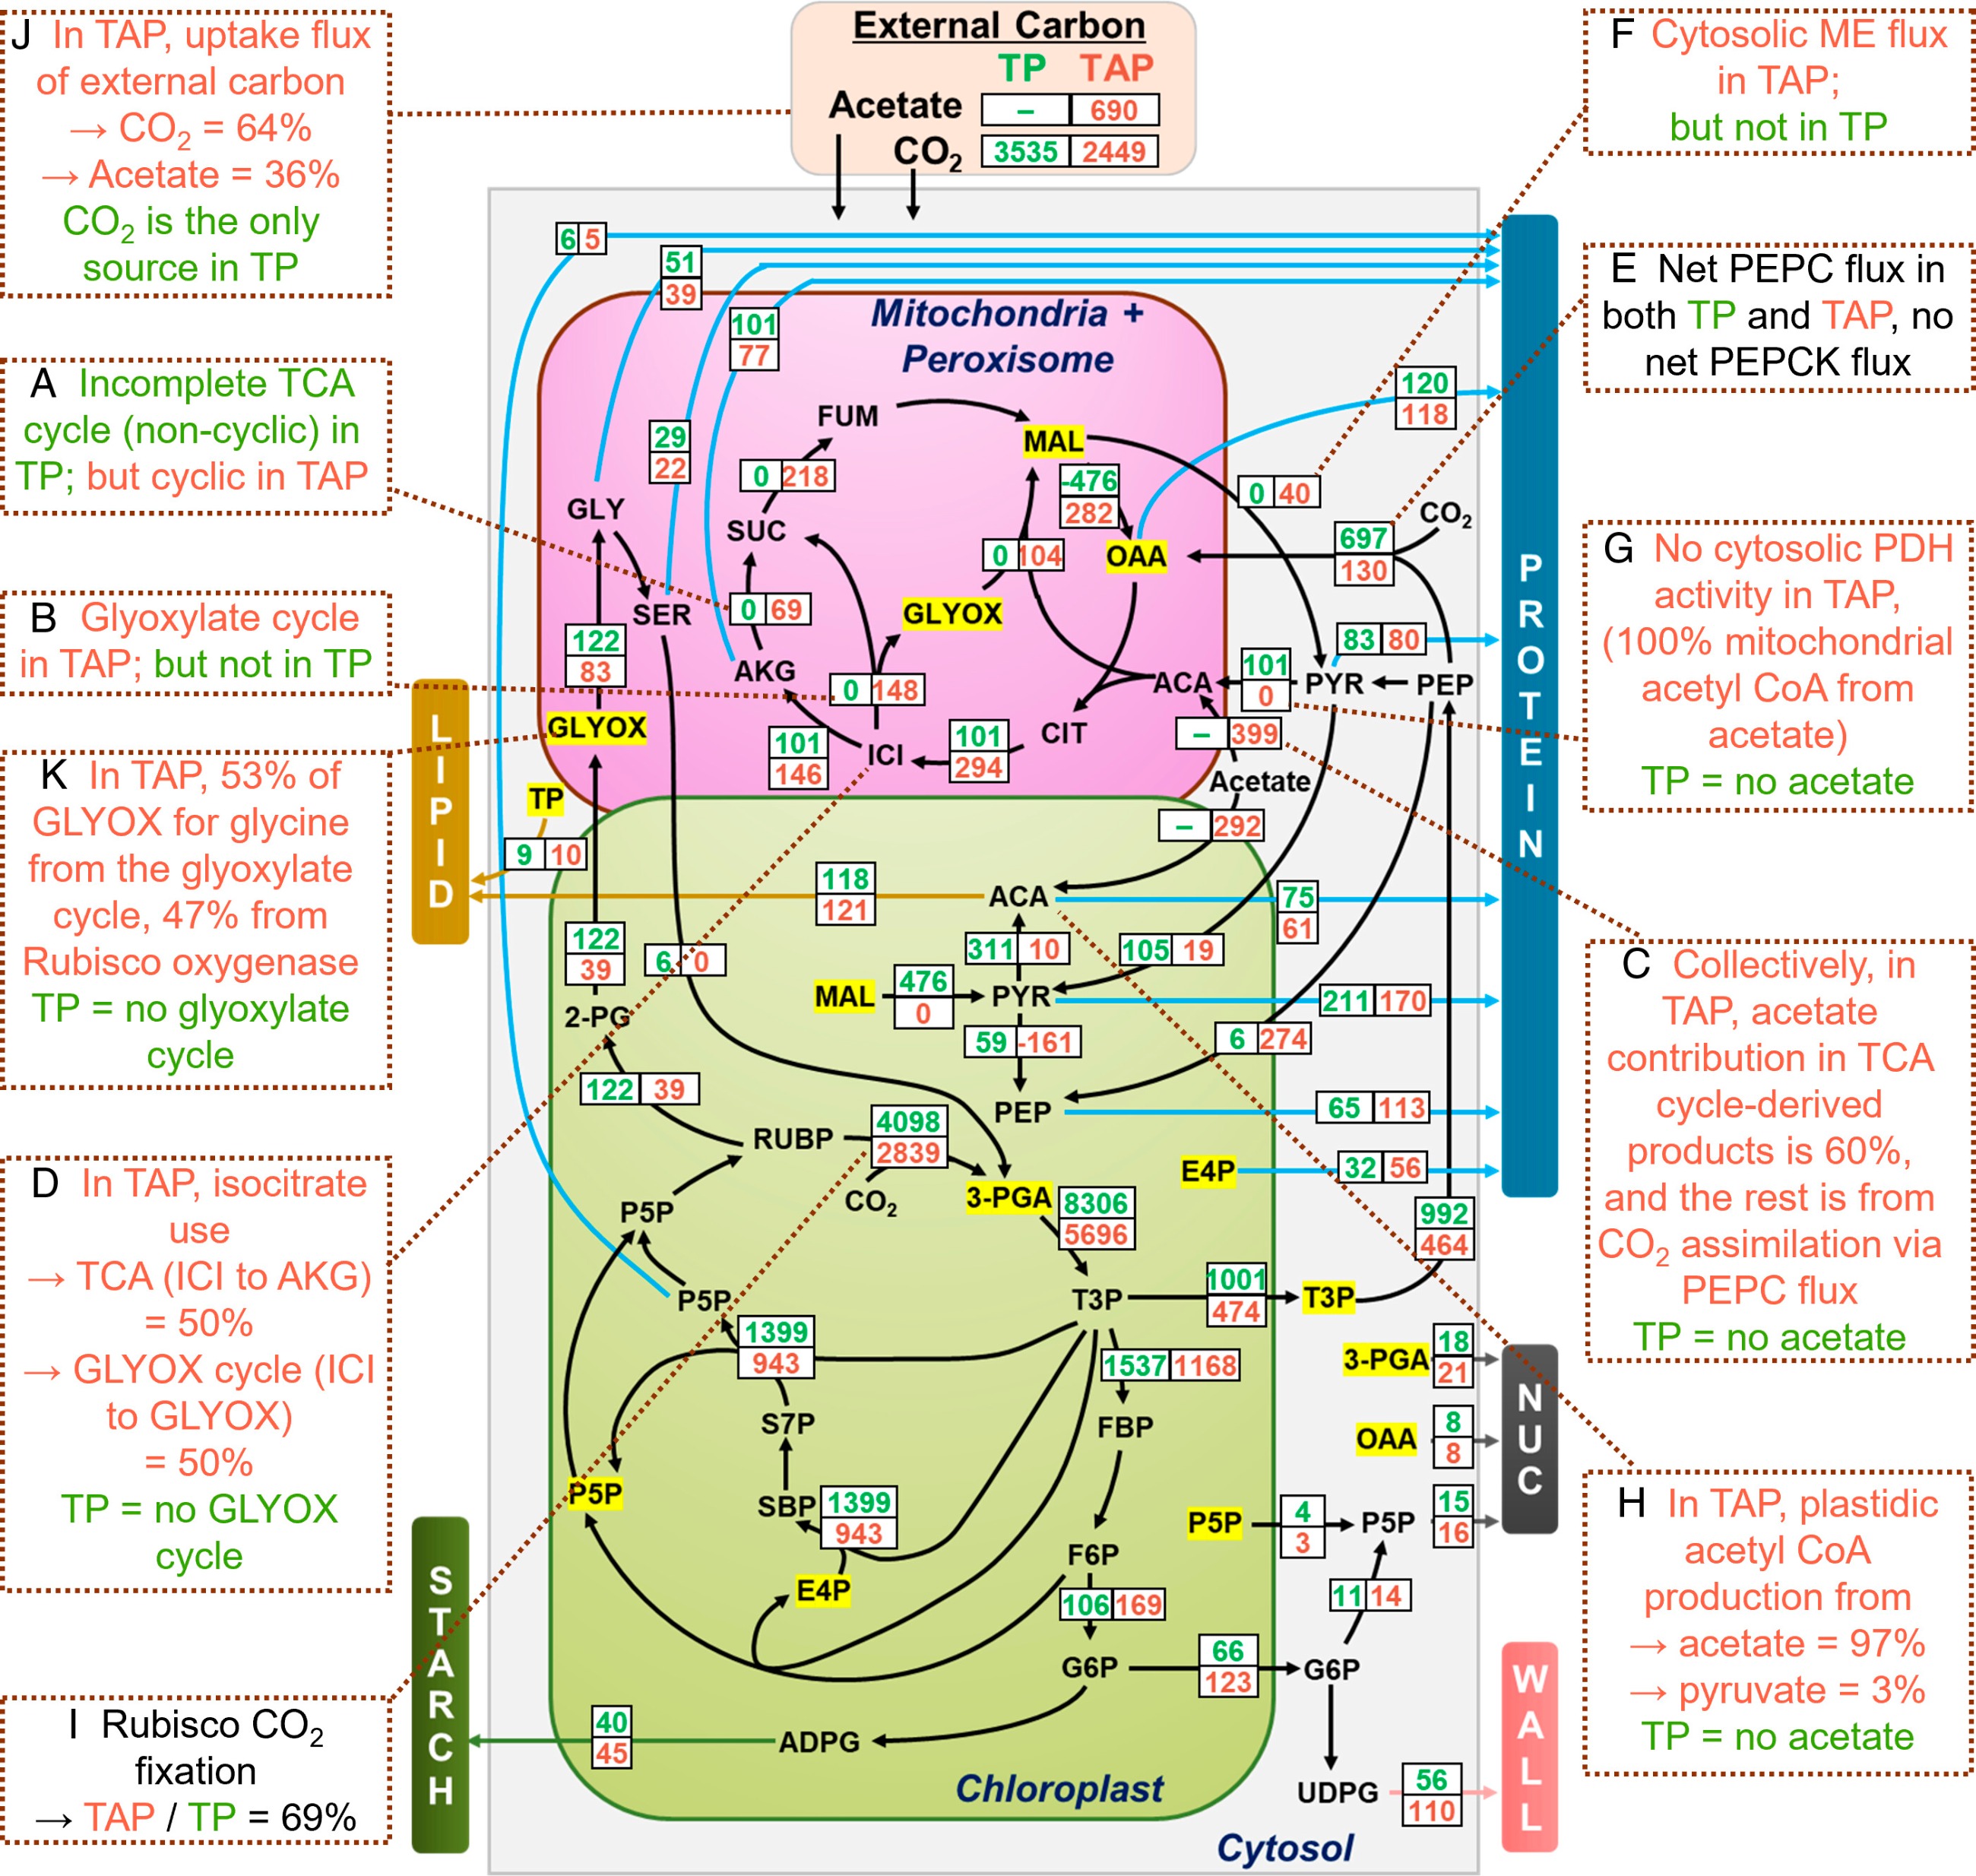
图2. INCA平台测定的自养及混合营养碳通量图谱
3. 乙醛酸循环非经典途径介导甘氨酸与丝氨酸的合成
衣藻虽具高效碳浓缩机制(光呼吸极低,羧化作用占比约1% -3%),但自养下光合作用仍是甘氨酸和丝氨酸的主要合成途径。而在混合营养下用于合成这两种氨基酸的乙醛酸中,近一半来自乙醛酸循环(非经典途径),其余来自Rubisco氧化作用。蛋白质组数据进一步佐证:混合营养下光呼吸产乙醛酸的酶减少,而乙醛酸循环酶上调。此外,甘氨酸和丝氨酸未像闭合光呼吸循环那样回收至PGA,而是几乎全部进入蛋白质合成,形成“开放式”光合作用环路,增强碳同化作用。
4. 混合营养细胞通过降低脱羧水平实现减少碳损耗,并将乙酸盐用于合成代谢
混合营养下,乙酰-CoA可直接由乙酸盐生成,无需经PDH催化丙酮酸脱羧;而自养下乙酰-CoA须由丙酮酸脱氢酶(PDH)催化丙酮酸生成,伴随碳损失。通量图显示,混合营养下叶绿体和线粒体中分别有97%和100%的乙酰-CoA直接来自乙酸盐。这一绕行策略避免或减少了脱羧步骤,有效降低了碳的呼吸损耗,使碳利用效率提升近33%。与此同时,TCA循环与乙醛酸循环的重塑引发碳流重分配,使混合营养型光合作用对总生物量的贡献降至14%(自养为36%)。与PEPCK的情况类似,混合营养下PDH通量虽显著降低,但PDH蛋白或转录本水平并未相应下降;作者推测这些酶在暗期仍需发挥功能。
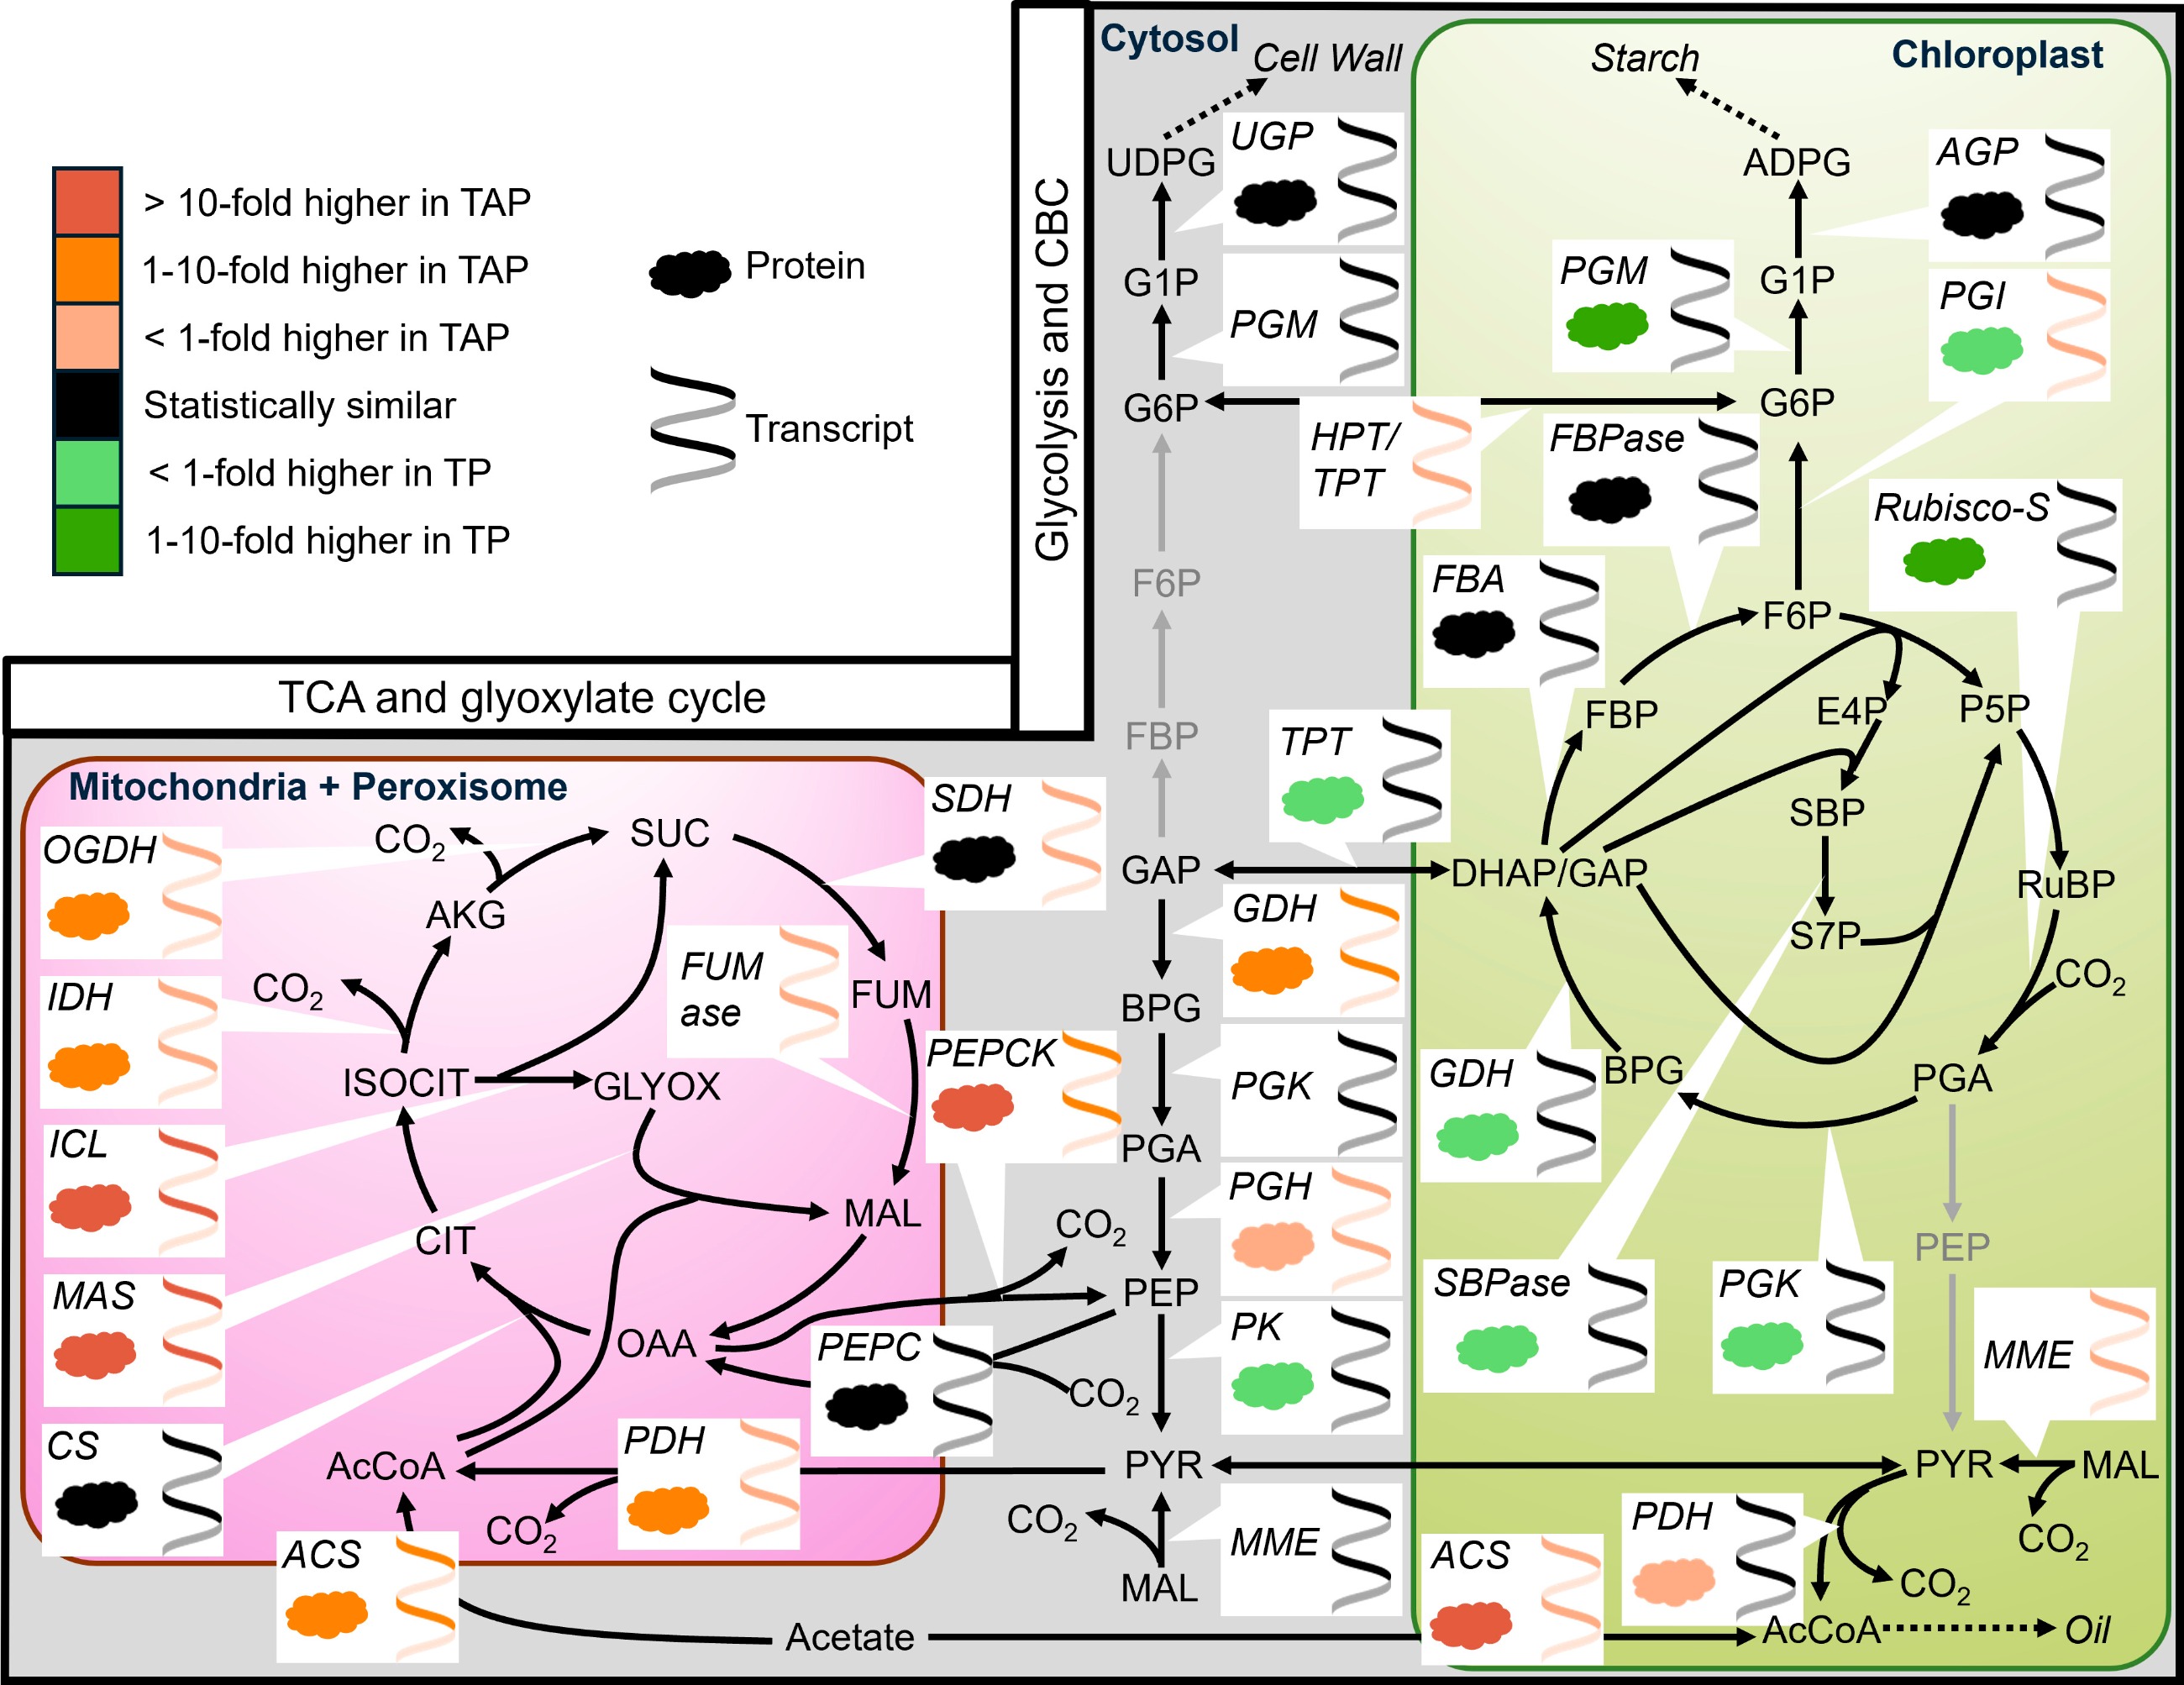
图3. 自养型与混合营养型衣藻在CBC、糖酵解、TCA及乙醛酸循环中的转录组学与蛋白质组学差异
5. 自养细胞中蛋白质合成与周转速率显著升高
作者通过INST-MFA首次定量了衣藻的生物量周转速率,这是FBA分析或此前衣藻MFA研究未曾涉及的参数。结果显示,自养条件下蛋白质合成与周转速率均显著升高,合成蛋白中53%发生了周转,而混合营养下仅32%。通过分析标记实验接近结束时氨基酸的标记状态,作者发现两种条件下氨基酸均未完全标记,提示存在未标记碳源持续贡献。自养条件下更高的蛋白质合成与周转意味着更大的能量负担,而混合营养下衣藻只需合成较少蛋白质即可维持其蛋白生物量。研究还发现,混合营养下淀粉分解与合成通量比值略高于自养(40% vs 33%),总淀粉含量略有增加,葡萄糖池则为自养的8倍。此外,标记末期自养细胞中检测到11%的未标记乙酰-CoA,提示脂质周转可能对乙酸池有一定的贡献。
6. 混合营养细胞可能通过抑制光合作用实现生长优化
与先前观察结果一致,乙酸盐使13CO2同化及CBC通量降低31%,却促进了更快的生长。通量分析表明,混合营养下总碳同化速率比自养高24%~34%,与30%的生长速率增幅相符;其中,生物量碳有36%直接来源于乙酸盐。乙酸盐对光合的抑制体现在标记早期13C掺入速率减慢,但1 h接近同位素稳态时,CBC及邻近的磷酸化中间体与氨基酸在两种条件下的13C丰度相当,说明乙酸盐来源的未标记CO2再固定对CBC及光合相关代谢池的贡献极小。稳态下叶绿体3-磷酸甘油酸的标记程度仅比自养低5%,进一步确认了这一观点。
作者通过蛋白质组学分析发现,混合营养下总蛋白占比显著低于自养(58% vs 67%),光合相关蛋白丰度明显降低——Rubisco和景天庚酮糖-1,7-二磷酸酶等在混合营养下降低了1.5~3.7倍。这些蛋白的转录水平在两种条件下相似,提示其蛋白丰度可能受翻译后调控。为评估蛋白质含量是否由碳限制或乙酸盐依赖的代谢重编程决定,作者增设了暴露于过量CO2中的自养和混合营养组。结果显示,无论碳是否充足,自养条件下蛋白含量均高于混合营养,说明观察到的效应与碳限制或生长速率无关。
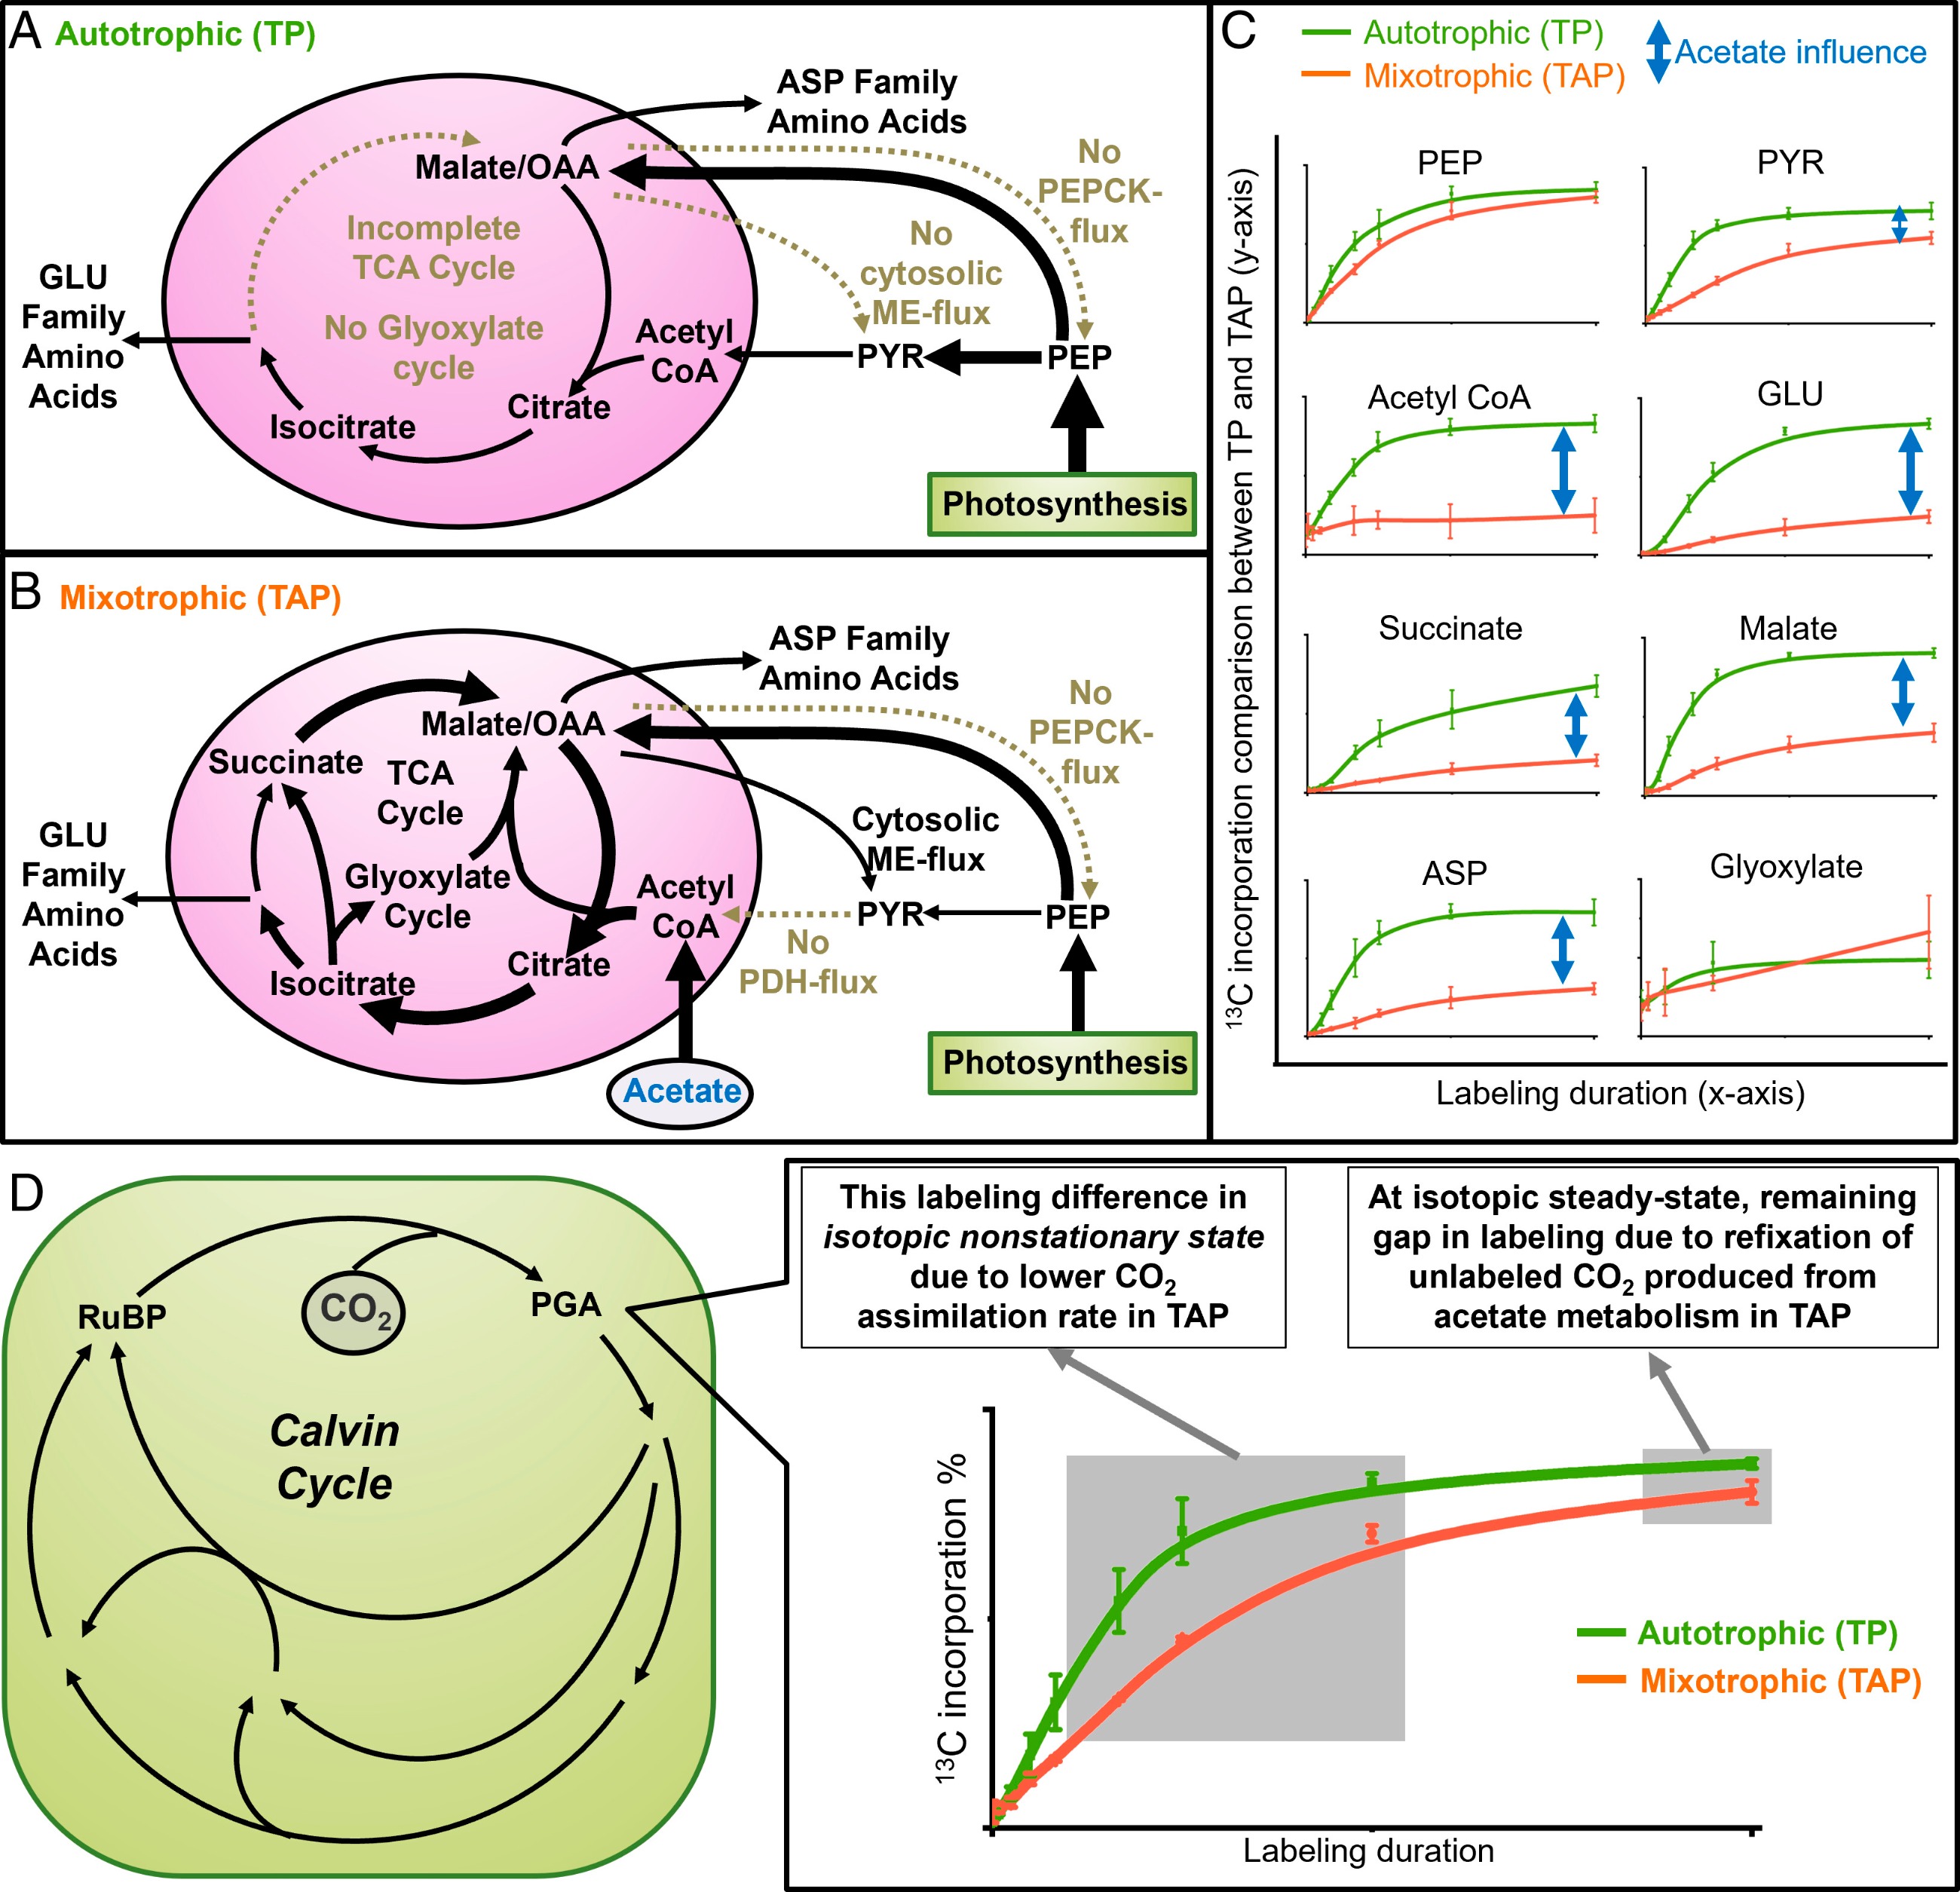
图4. 自养与混合营养条件下TCA循环与CBC代谢物13C标记差异
03 研究结论
此前普遍认为,衣藻混合营养代谢是异养暗代谢与自养光代谢的并行叠加,即乙酸盐碳经糖异生大量流向淀粉和蔗糖。而本研究发现,混合营养生长实际上是二者部分解耦的:光合反应和己糖代谢由CO2驱动,有机酸和氨基酸合成则由乙酸盐驱动。通过激活乙醛酸旁路绕过脱羧步骤,细胞避免了将乙酸盐碳经糖异生转化为己糖的高能耗过程,从而使混合营养生长速率超过自养速率与异养速率之和。因此,乙酸盐对光合作用的抑制,本质上是一种优化生长的代谢适应策略。