植物代谢途径研究进展:经典与非经典途径
代谢是植物生长与生存的基础。植物依靠一张高度互联的代谢网络,把光能、CO2、水和矿质养分转化为生长所需的各类物质。教科书中的糖酵解、三羧酸循环、磷酸戊糖途径、卡尔文-本森循环和光呼吸等“经典途径”,是认识这张网络的基础。近年来,稳定同位素标记的代谢流分析和计算模型不断揭示:在不同组织、发育阶段和环境条件下,碳的实际流向常常偏离经典途径的描述,形成多种“非经典途径”。
一、植物经典代谢途径
(一)中心碳代谢:糖酵解(EMP)、三羧酸循环(TCA)与磷酸戊糖途径(PPP)
中心碳代谢途径由EMP、TCA和PPP共同构成,广泛存在于植物呼吸作用中,是分解转化碳水化合物、释放能量的核心过程,并与蛋白质、脂质、核酸、有机酸及次生代谢相互连接。
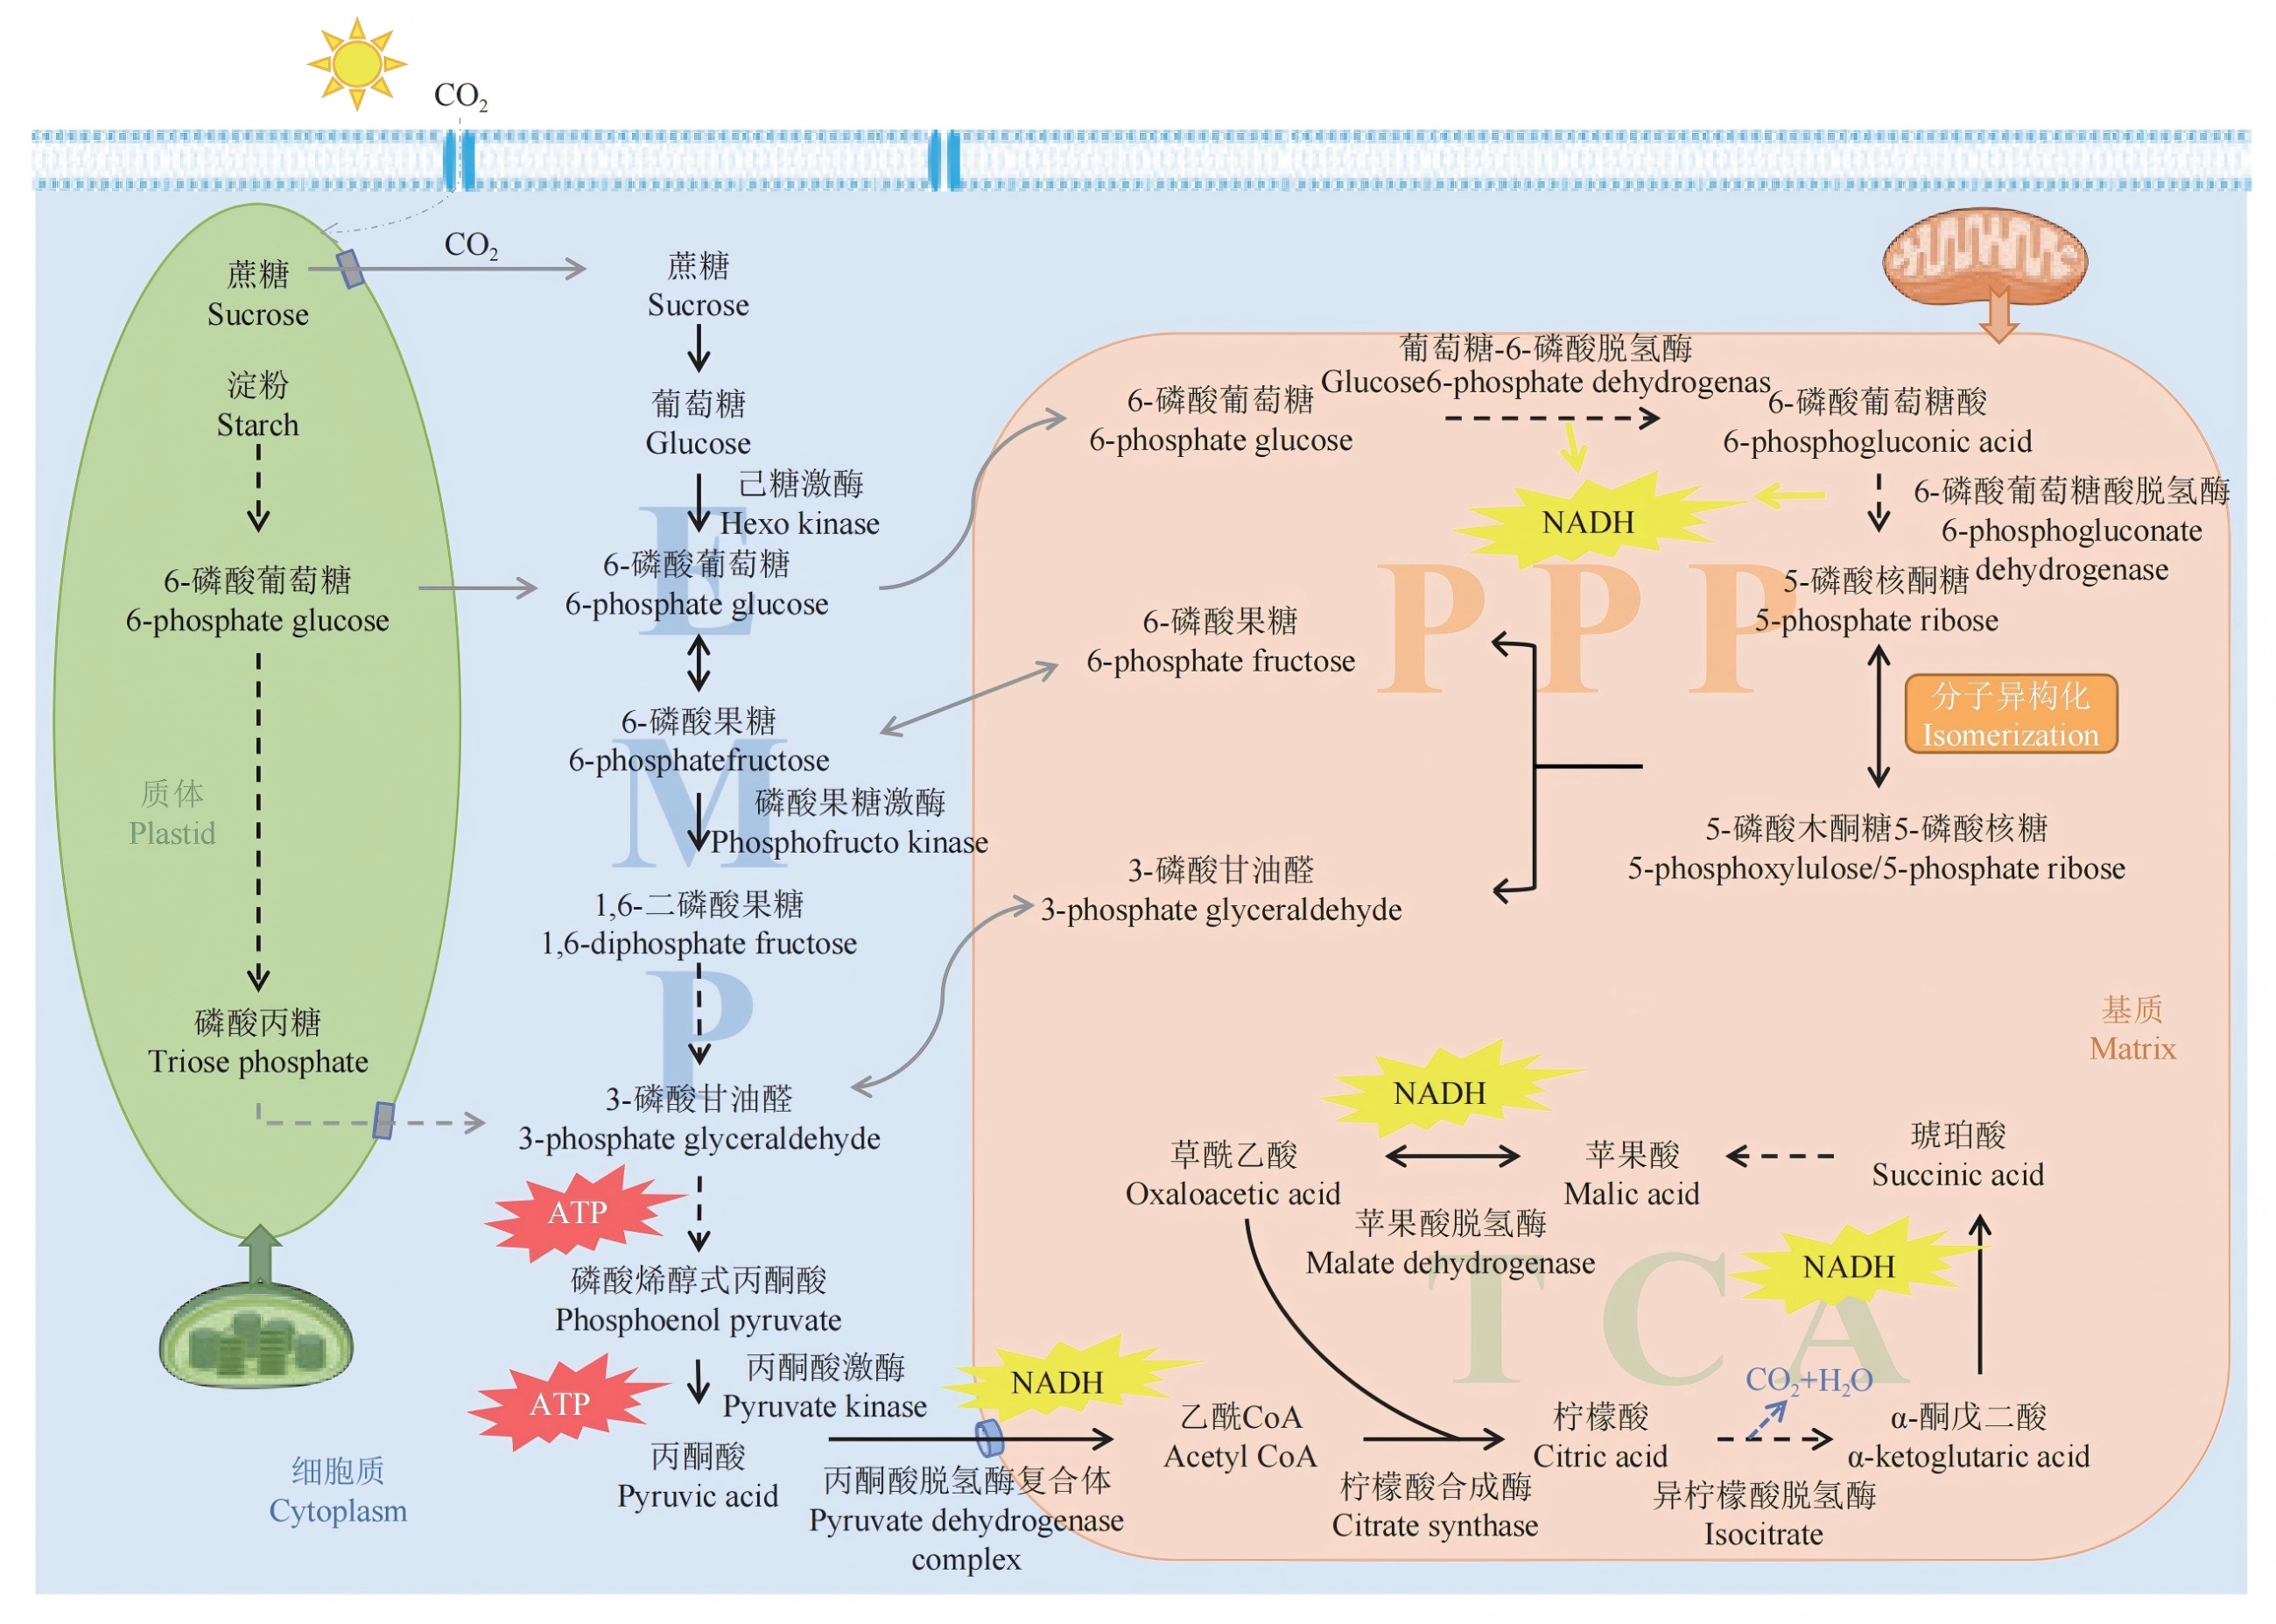
图1 植物细胞中经典的中心碳代谢途径示意(董文科等, 2025)
EMP主要在细胞质中进行,把己糖逐步氧化为丙酮酸,己糖激酶、磷酸果糖激酶和丙酮酸激酶催化的步骤是重要的调控点。其中最后一步由丙酮酸激酶把磷酸烯醇式丙酮酸(PEP)转化为丙酮酸,这一反应强烈放能,胞质和质体中的丙酮酸激酶都受到柠檬酸、谷氨酸和ATP的别构抑制。在根、花和发育中的胚等非绿色组织的质体中,还存在一套完整的糖酵解反应。
丙酮酸经线粒体丙酮酸载体(MPC)进入线粒体后,由丙酮酸脱氢酶复合体氧化脱羧生成乙酰-CoA,再与草酰乙酸在柠檬酸合酶作用下生成柠檬酸,进入TCA循环。循环中产生的NADH和FADH2经氧化磷酸化合成ATP;柠檬酸、2-酮戊二酸、苹果酸等有机酸则被大量反应取用,为氨基酸等物质的合成提供碳骨架。
PPP同时存在于细胞质和质体中。其氧化阶段由葡萄糖-6-磷酸脱氢酶(G6PDH)等催化,把葡萄糖-6-磷酸(G6P)氧化脱羧为5-磷酸核酮糖,同时生成CO2和NADPH;非氧化阶段则在糖酵解中间产物与各种磷酸戊糖之间相互转换。NADPH是脂肪酸、氨基酸等还原性合成以及抗氧化反应的主要还原力来源,5-磷酸核糖则是核苷酸合成的前体。
(二)卡尔文-本森循环(CBB)与光呼吸
在光合组织中,中心碳代谢的范围更广,还包括CBB、光呼吸以及大量回补反应和跨膜转运过程。在叶绿体中,CBB负责把CO2固定为有机碳:核酮糖-1,5-二磷酸羧化酶/加氧酶(Rubisco)催化核酮糖-1,5-二磷酸(RuBP)羧化生成3-磷酸甘油酸(3-PGA),后者利用光反应提供的ATP和NADPH被还原为磷酸丙糖;一部分磷酸丙糖在叶绿体内合成淀粉或输出到细胞质合成蔗糖,其余用于再生RuBP。作为一个自我催化的循环,CBB的中间产物还会被核苷酸、芳香族氨基酸、苯丙烷类和萜类的合成取用,需要依靠回补反应维持中间产物库。
Rubisco也能以O2为底物发生加氧反应,生成2-磷酸乙醇酸。经典的光呼吸途径描述了2-磷酸乙醇酸如何经叶绿体、过氧化物酶体和线粒体中的一系列反应回收为3-PGA,重新进入CBB,其间有一部分碳以CO2形式释放;光呼吸还与硝酸盐同化、硫代谢和一碳代谢密切相关。
叶绿体中的EMP与CBB受到相反方向的调控,以避免两者之间无谓地来回转化:光照下质体磷酸果糖激酶受到硫氧还蛋白依赖的抑制;同时,叶绿体中磷酸甘油酸变位酶和烯醇化酶的表达下调,3-PGA无法在叶绿体内直接转化为PEP。
(三)丙酮酸在中心碳代谢中的枢纽地位
在中心碳代谢中,大量碳流汇入丙酮酸库。丙酮酸一方面进入线粒体驱动呼吸作用,另一方面在质体中转化为乙酰-CoA用于脂肪酸从头合成,并作为缬氨酸、亮氨酸等支链氨基酸的前体;丙酮酸经转氨生成丙氨酸的反应与低氧和氮胁迫响应有关;在C4植物和景天酸代谢(CAM)植物中,丙酮酸磷酸双激酶(PPDK)把丙酮酸重新转化为PEP,是CO2浓缩机制的必要步骤。低氧条件下,丙酮酸转入发酵途径以再生NAD+、维持糖酵解产生ATP,而有氧条件下的发酵代谢也参与植物的生长发育。
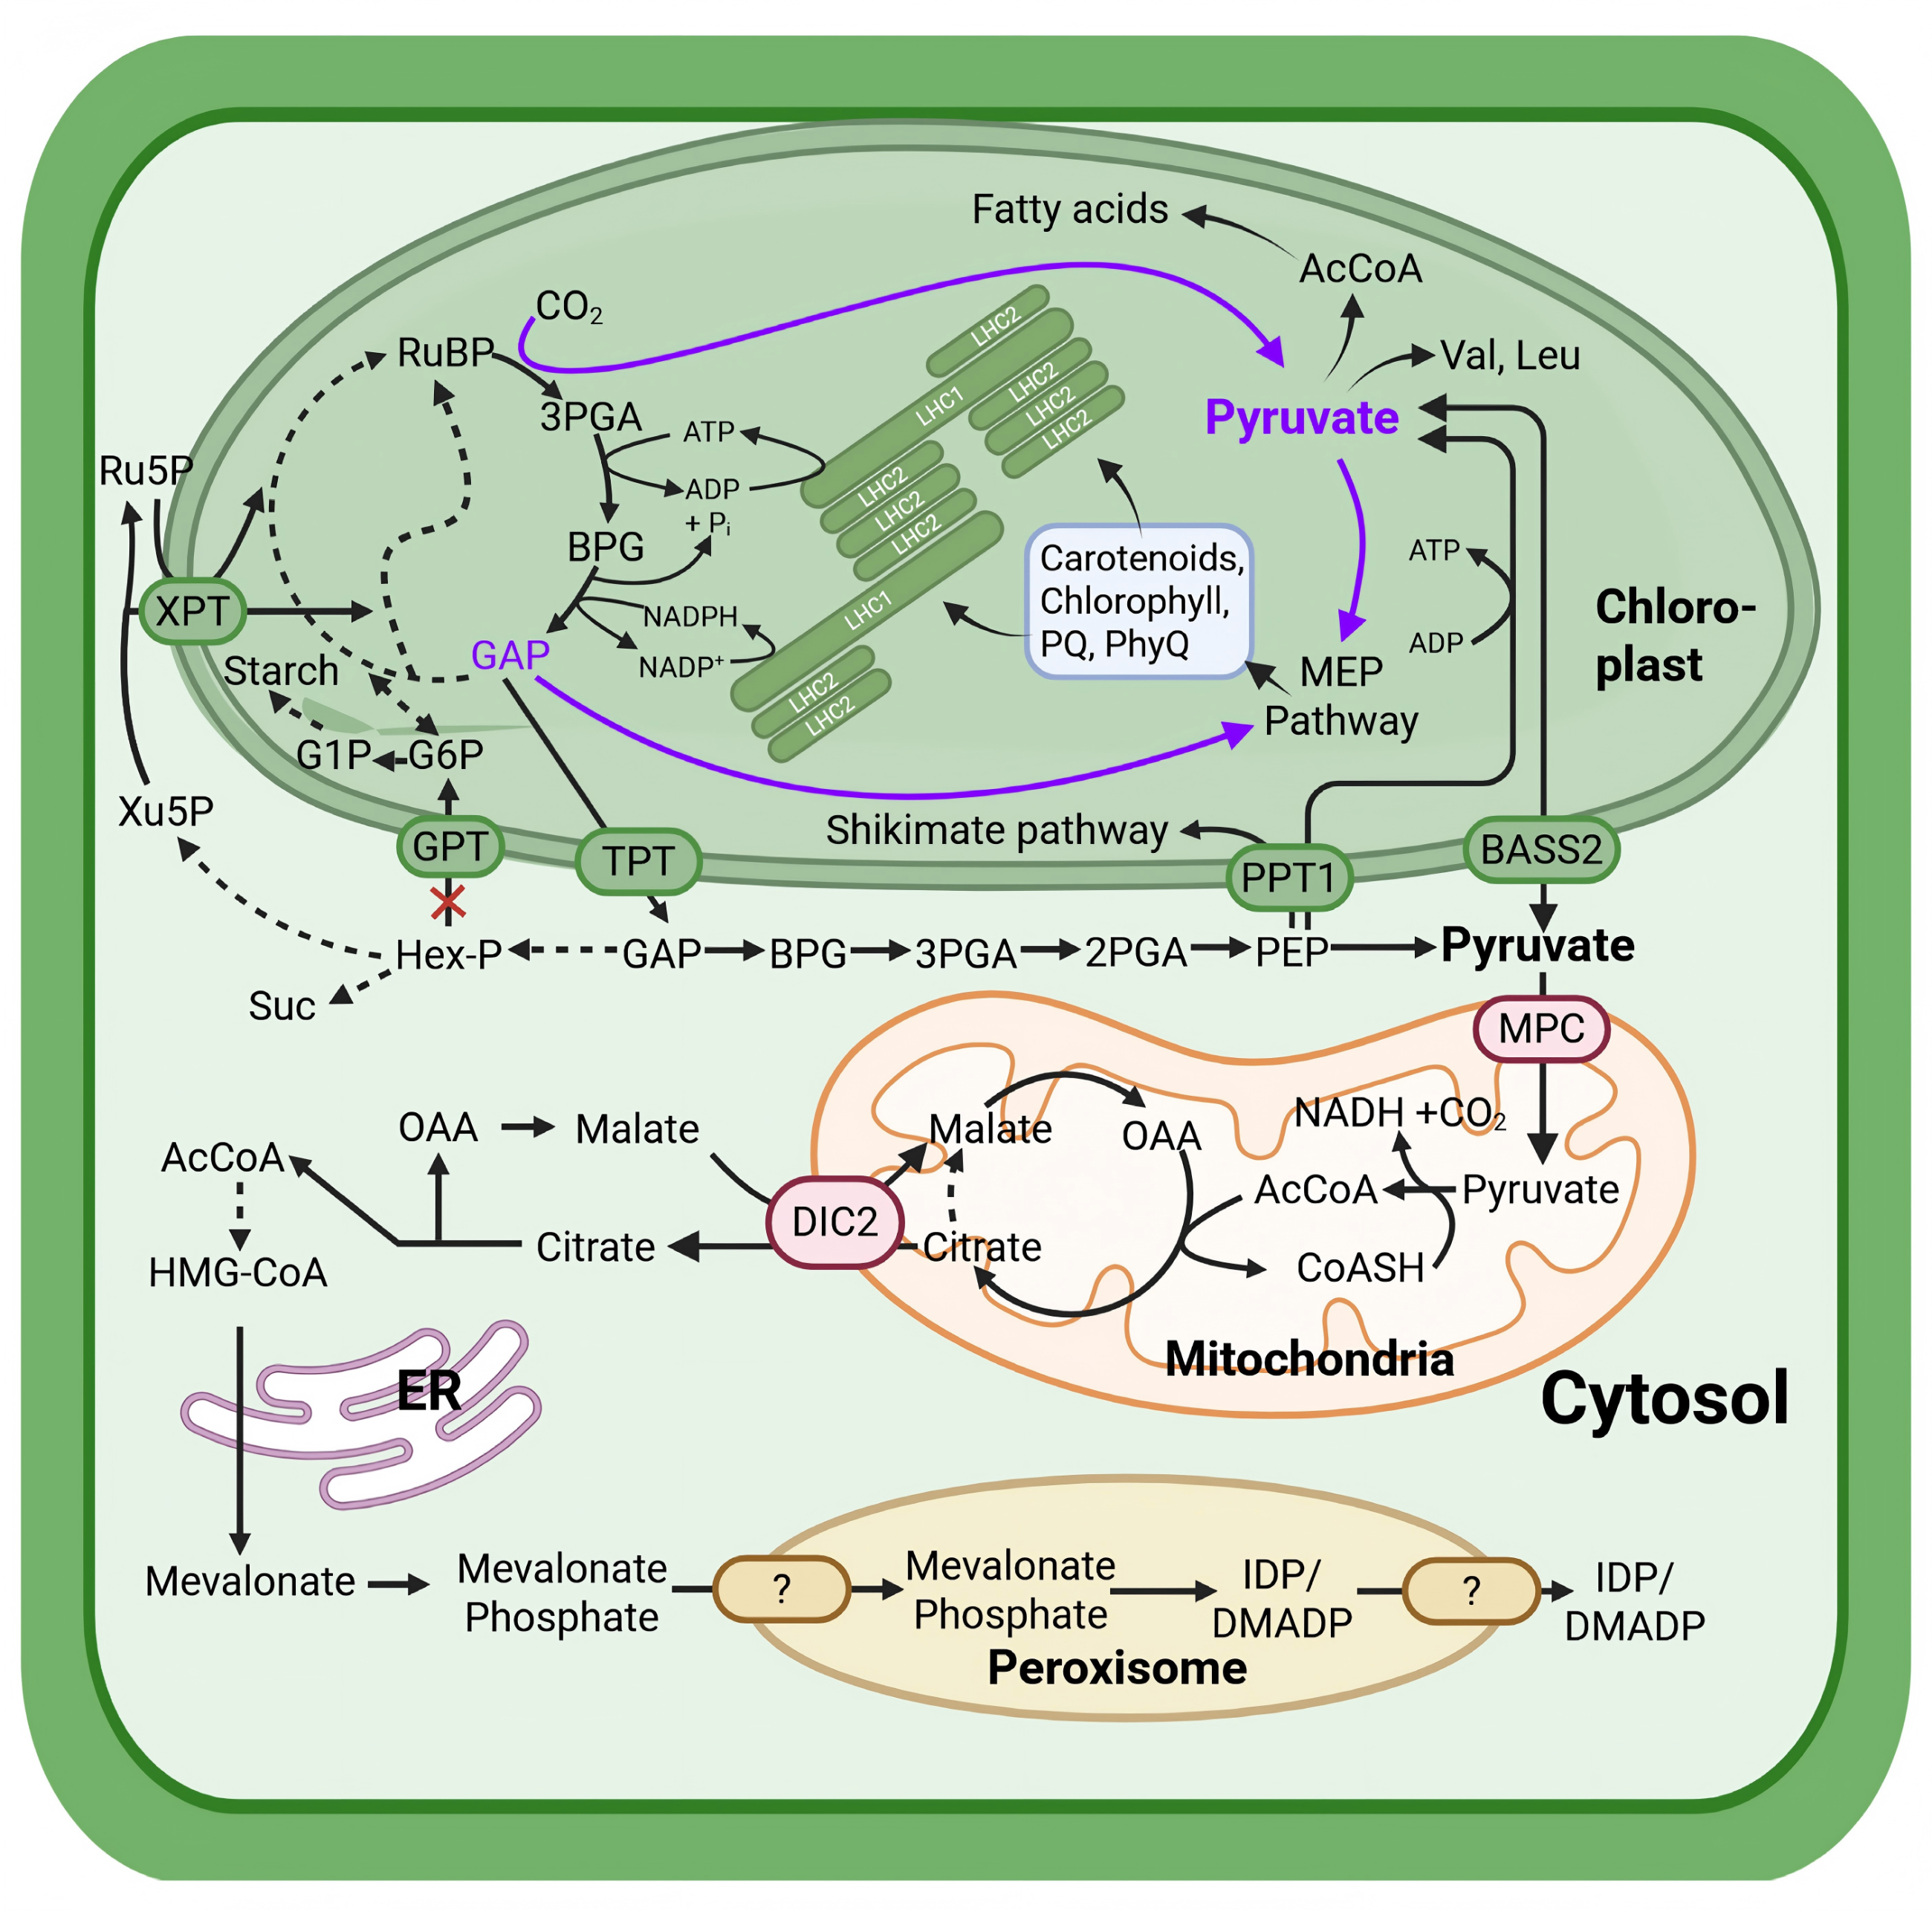
图2 丙酮酸在植物代谢中的作用(Evans SE等,2026)
(四)萜类前体合成的甲基赤藓醇磷酸途径(MEP)与甲羟戊酸途径(MVA)
萜类是植物中数量庞大、结构多样的天然产物,参与光合色素、甾醇、质体醌、泛醌、生育酚和叶绿素等合成,并为多种植物激素提供碳骨架。所有萜类均来源于通用C5前体异戊烯基二磷酸(IDP)和二甲基烯丙基二磷酸(DMADP),它们由两个区隔化途径产生:位于质体的MEP和分布于细胞质、内质网及过氧化物酶体的MVA。
在质体中,MEP始于甘油醛-3-磷酸和丙酮酸缩合形成1-脱氧-D-木酮糖-5-磷酸(DXP),由DXP合酶催化,是将中心代谢碳导向质体萜类生物合成的关键步骤。在细胞质中,丙酮酸经间接途径生成乙酰-CoA,再进入MVA:线粒体基质中合成的柠檬酸经线粒体二羧酸载体 2(DIC2)输出到细胞质,由ATP-柠檬酸裂解酶裂解生成乙酰-CoA和草酰乙酸;草酰乙酸被还原为苹果酸,经DIC2再输入线粒体,维持氧化还原和碳平衡。
二、植物非经典代谢途径
(一)TCA循环的非经典运行模式
植物 TCA 循环并不总是首尾相接的完整环,存在多种非经典运行模式:在光下可呈“分叉”状态,正向支路为硝酸盐同化提供碳骨架,反向支路与还原当量平衡有关;柠檬酸可经线粒体二羧酸载体 DIC2 以苹果酸-柠檬酸交换方式输出到细胞质。异养组织中同样常见非经典模式,TCA 循环流量可分段、反向或主要流向柠檬酸合成,并为细胞质脂肪酸延长提供乙酰-CoA。
(二)CBB的G6P支路
CBB并非只靠自身酶系封闭运行。叶绿体输出的磷酸丙糖可在细胞质转化为G6P,经氧化PPP生成磷酸戊糖,再经木酮糖-5-磷酸/磷酸转运体(XPT) 回到叶绿体重新进入CBB,形成 G6P支路。该支路主要发生在细胞质,将NADPH和CO2从叶绿体转移到细胞质,参与氧化还原平衡。日间呼吸中相当大比例的CO2释放可能来自该支路。CBB在保卫细胞和韧皮部伴胞中也可能以不同于经典描述的方式运行。
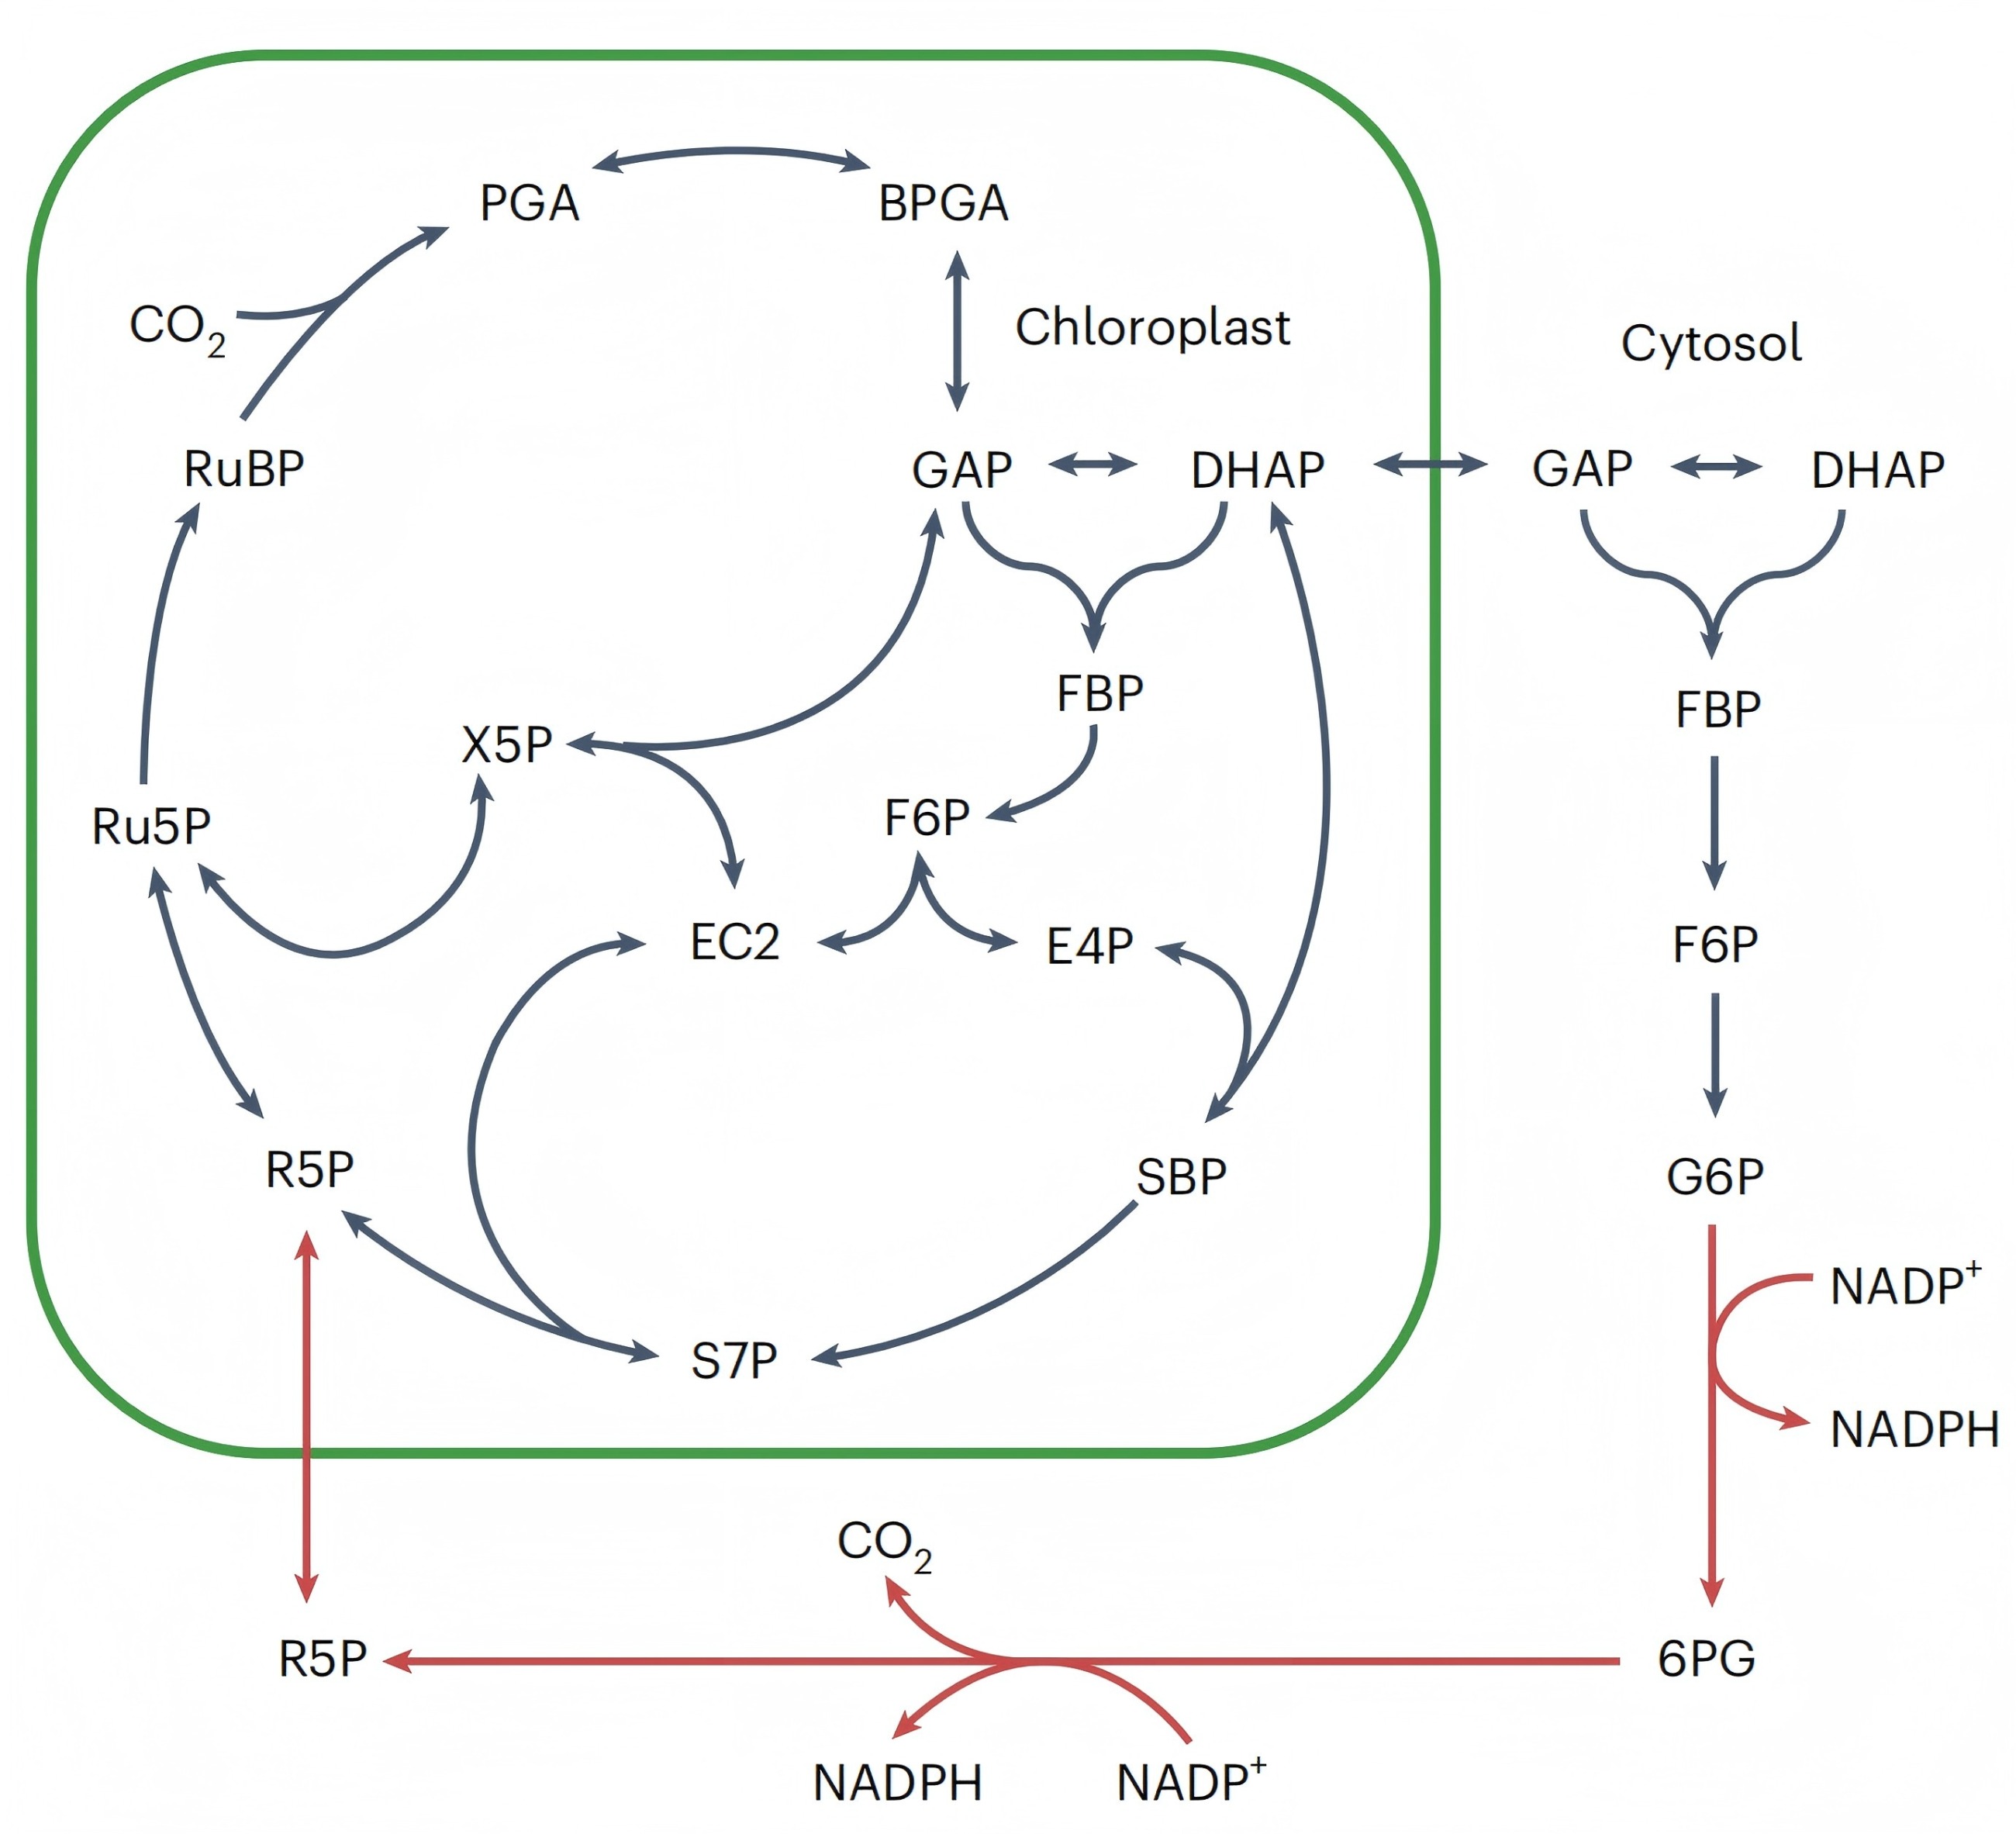
图3 非经典途径向CBB提供的碳源(Sweetlove LJ等,2025)
(三)Rubisco的非CBB依赖型碳固定
在发育中的绿色油料种子中,Rubisco可不依赖CBB工作:脂肪酸合成释放的 CO2可被重新固定,生成的3-PGA用于脂肪酸合成,所需ATP和还原力由光驱动光合电子传递提供。这条PRK/Rubisco支路不仅参与碳回收,也影响种子糖酵解、淀粉代谢、光合作用和油脂积累。
(四)光呼吸的代谢出口与非闭合循环特性
光呼吸并非完全闭合的回收循环。相当一部分中间产物以甘氨酸、丝氨酸或一碳单位形式离开循环,这些出口流量会改变光呼吸对ATP和NADPH的需求,并影响整个代谢网络。光呼吸还参与氮素同化,其主要作用可能包括供应甘氨酸和丝氨酸,而非仅仅补充CBB中间产物。
(五)叶绿体丙酮酸与胞质乙酰-CoA的替代来源
叶绿体中3-PGA不能直接转化为丙酮酸,但MEP途径和脂肪酸合成都需要丙酮酸,这构成“丙酮酸悖论”。Rubisco的副反应是叶绿体丙酮酸的重要来源之一。此外,磷酸丙糖经细胞质糖酵解生成 PEP 后回输、叶绿体苹果酸酶氧化脱羧、质体BASS2运输等,也可提供丙酮酸。细胞质中缺乏丙酮酸脱氢酶复合体,MVA途径所需乙酰-CoA需绕道线粒体:丙酮酸在线粒体生成柠檬酸,经DIC2输出到细胞质,再由 ACL 裂解为乙酰-CoA和草酰乙酸。不同细胞类型对丙酮酸和PEP的分配各有侧重,并由质体转运体和关键酶的细胞特异表达调控。
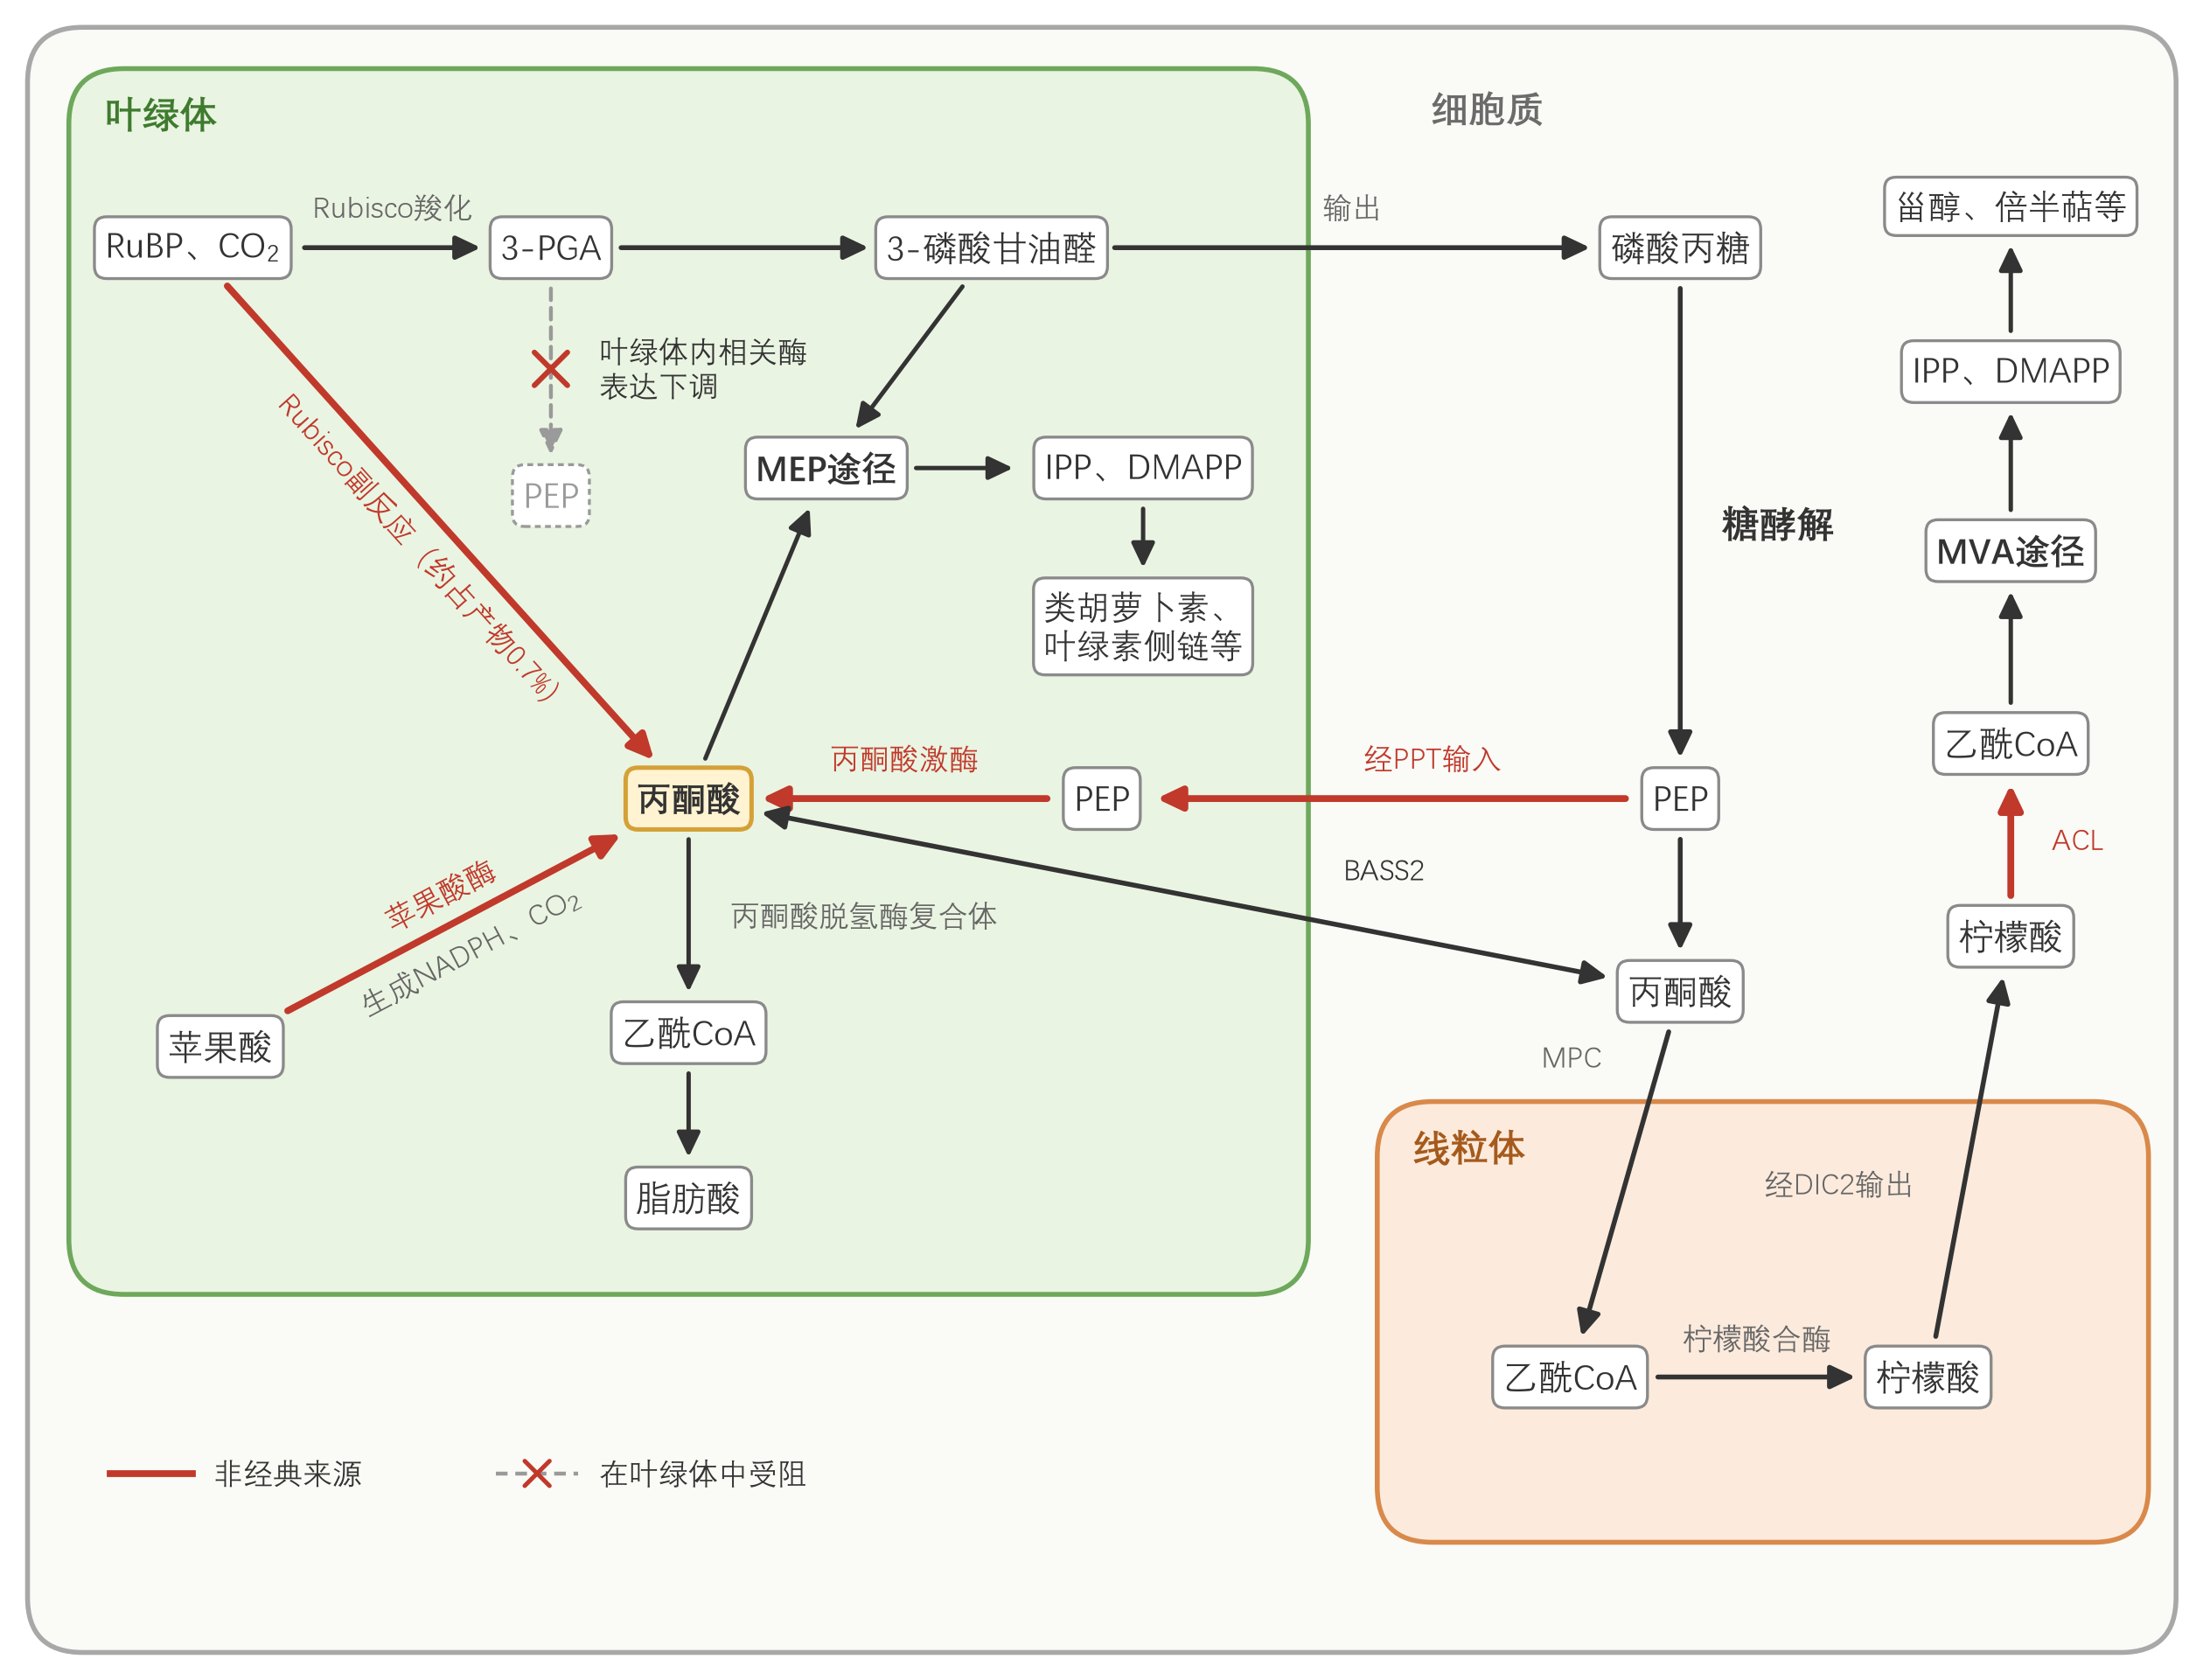
图4 叶绿体丙酮酸与细胞质乙酰-CoA的来源示意
三、代谢流分析:碳流量的定量解析
(一)代谢流量(代谢通量)分析的必要性
转录组、蛋白质组和代谢组测到的是某一时刻的“存量”,既不能区分正在合成的活跃分子与先前代谢状态的残留,也不能直接代表反应速率;仅凭转录本丰度并不能可靠地推断中心代谢的流量。代谢流量受质量守恒约束,描述的是原子在途径中的实际流动,能够定量刻画细胞的运行状态,也为其他组学得出的结论提供验证。
同位素示踪本身就是阐明经典途径的主要手段。早期研究使用放射性14C,只能粗略区分标记的去向;利用稳定同位素13C并结合核磁共振(NMR)和质谱(MS),可以测定更多代谢物的标记,甚至确定标记位于分子中的哪个碳原子。把这些数据拟合到描述碳原子转移关系的网络模型中,就能在统计置信区间内估算各反应的流量,这就是13C代谢流分析(13C-MFA)。
一次完整的代谢流分析通常包括六个步骤:①根据研究问题选择示踪底物;②确定采用稳态还是非稳态标记;③测定底物消耗、生物量合成等外部速率;④用NMR或MS测定代谢物的同位素分布;⑤构建包含碳原子转移关系的代谢网络;⑥通过计算最小化模拟标记与实测标记的差异,多次更换初始值寻找全局最优解,评估流量置信区间,必要时修正网络并重复分析。
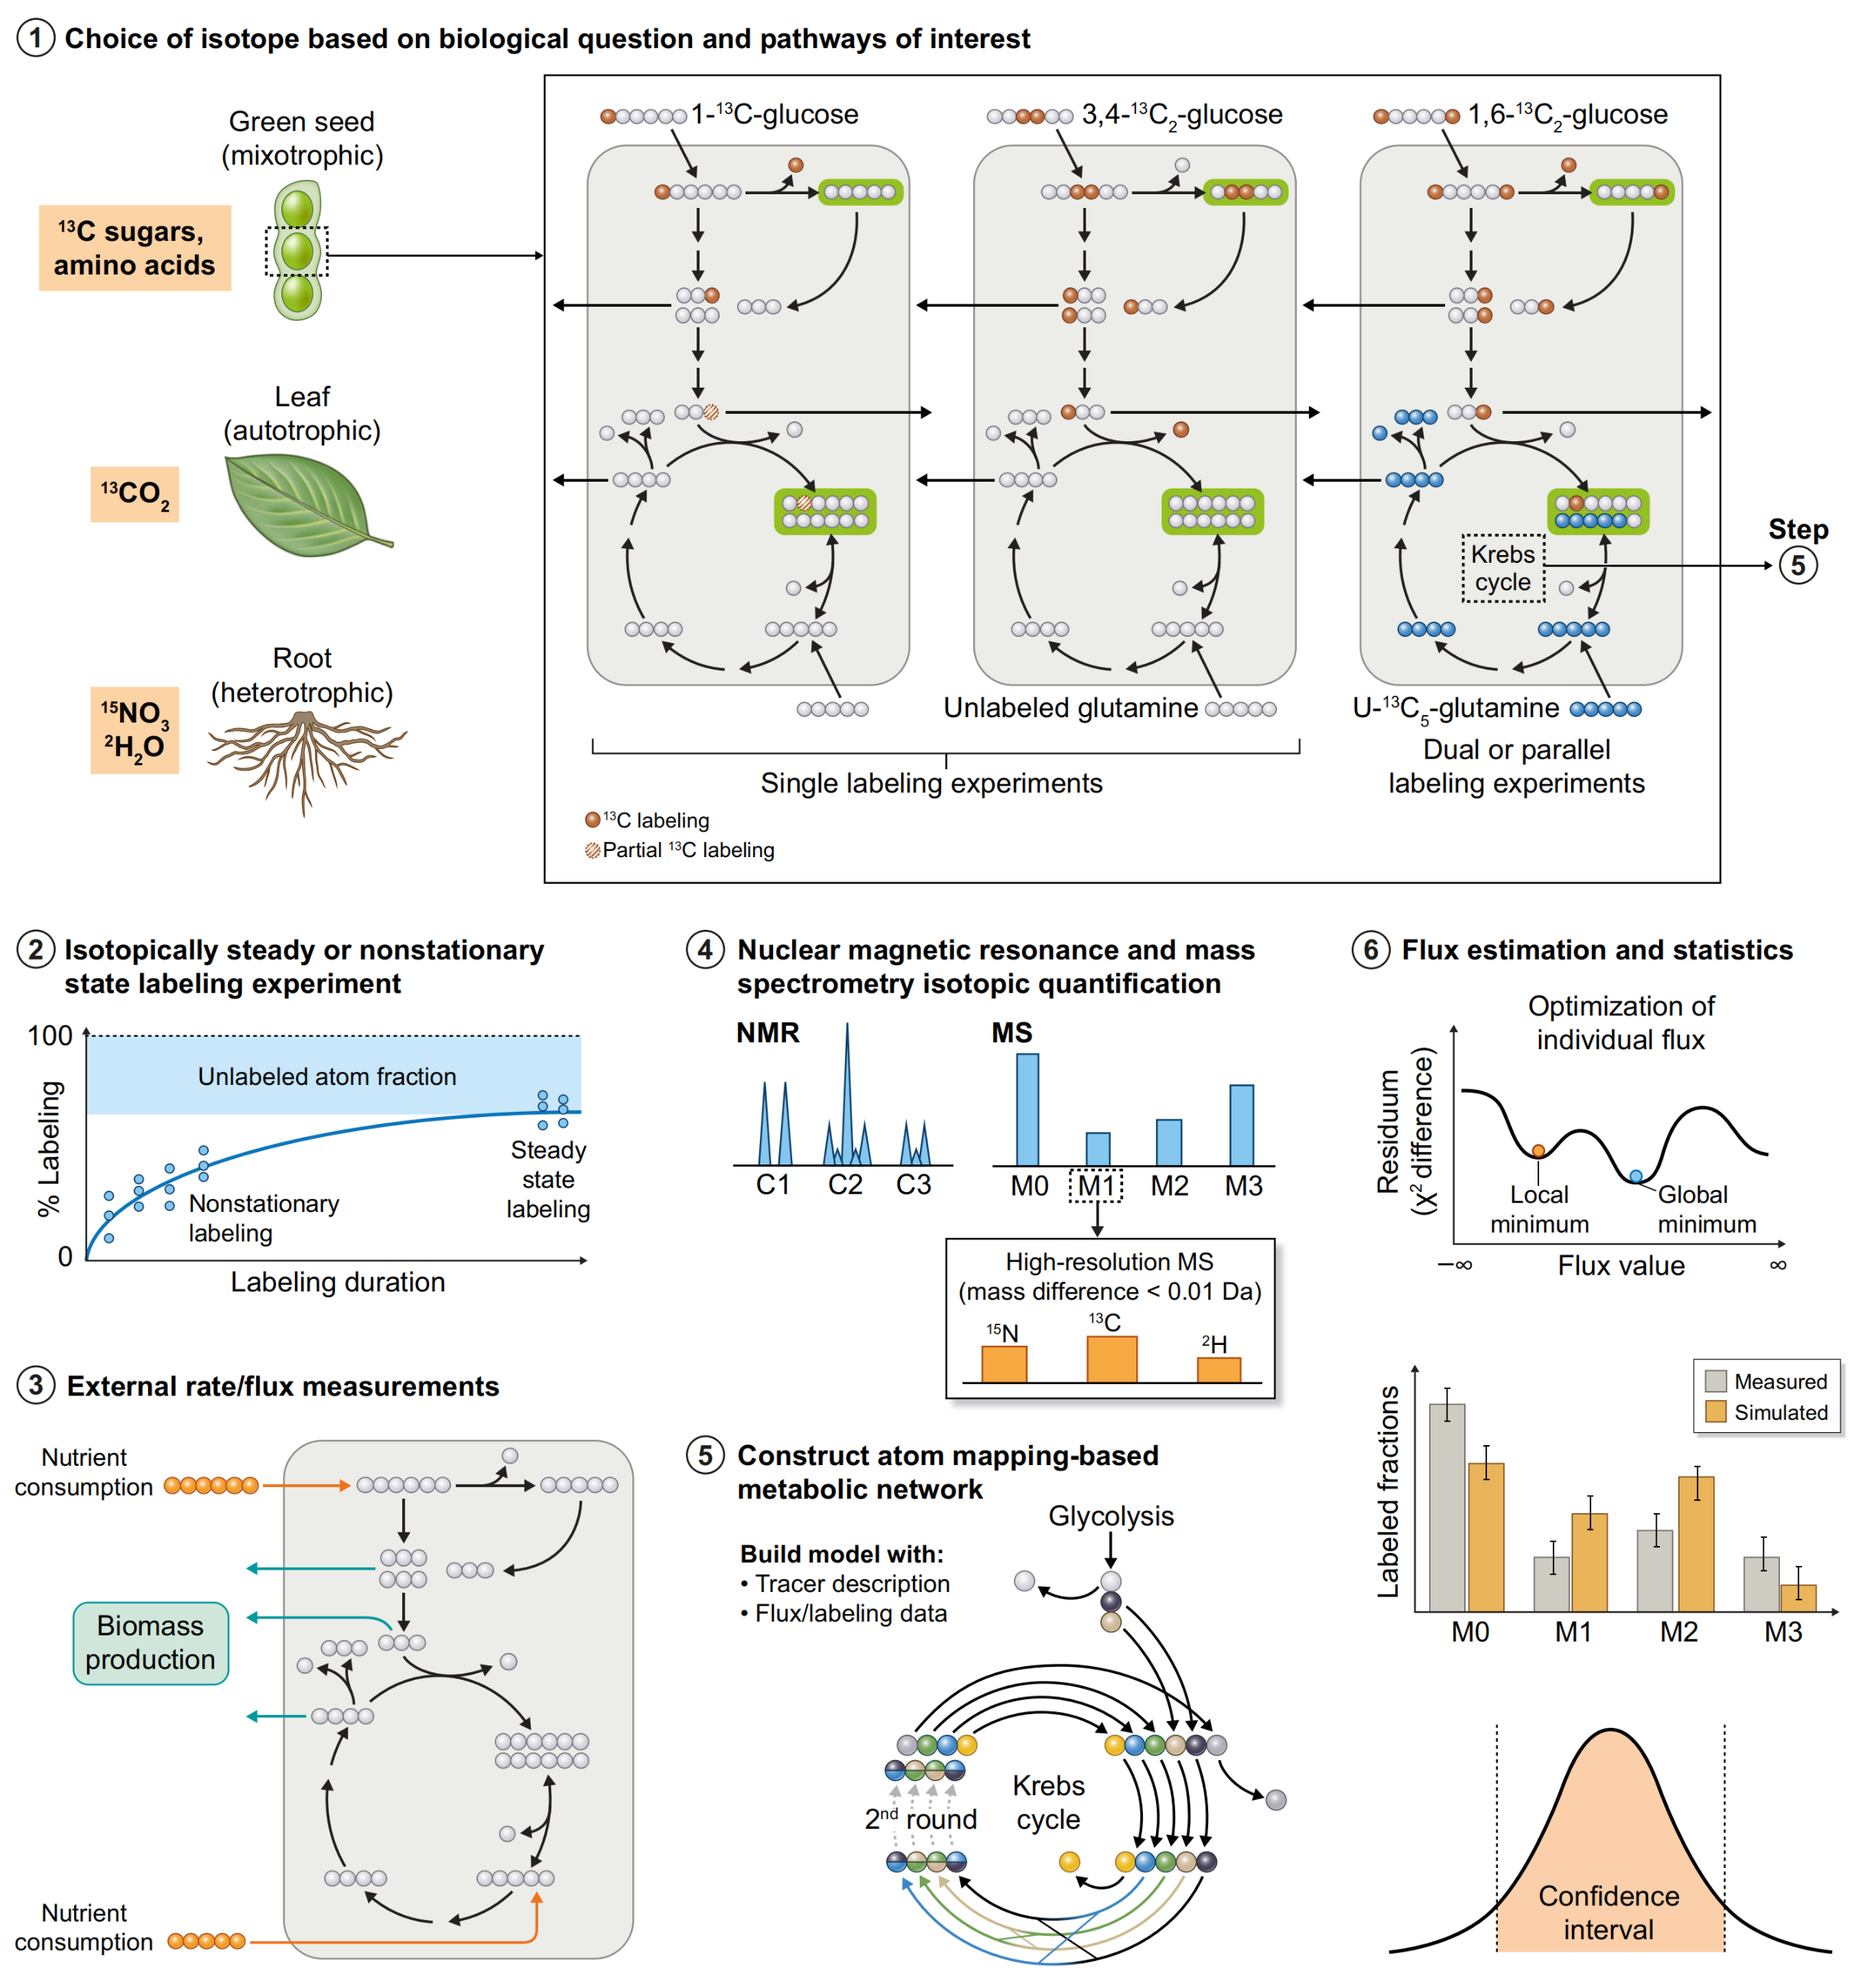
图5 代谢流量分析的关键步骤(Koley S等,2024)
(二)稳态与非稳态¹³C-MFA
稳态代谢流分析在持续供给标记底物、代谢物同位素分布不再变化后取样,只需一个时间点的数据。它适合代谢稳态持续时间较长的异养体系。光合组织则不同:叶片代谢随昼夜不断变化,稳态持续时间短;而且自养组织只有 CO2一种碳源,达到同位素稳态时所有碳原子都会被均匀标记,无法提供流量信息。同位素非稳态代谢流分析(INST-MFA)在标记开始后的多个时间点取样,用微分方程拟合各代谢物的标记速率来估算流量,适用于代谢稳态只能维持数分钟到数小时的体系。该方法已从光合细菌推广到植物叶片等光合组织。
(三)约束模型与流量平衡分析
与实验测定互为补充的是计算建模。动力学模型用速率方程描述每个酶促反应,可以分析底物供应、产物需求和酶调控变化对网络的影响,但需要大量酶动力学参数,通常只能用于研究较充分的小型网络片段。流量平衡分析(FBA)不需要酶动力学参数,而是依据反应的化学计量关系,在底物吸收速率、生物量组成、反应方向等约束条件下,用线性规划求出满足某一目标的最优流量分布,可应用于基因组规模的代谢网络。由于满足条件的最优解往往不止一个,流量变异性分析(FVA)可以给出每个反应在最优解空间内允许的流量范围;其他方法则从不同角度揭示网络的灵活性。模型给出的是可能性,是否真实发生还需要同位素标记实验来检验。两类方法结合,已经发现了大量偏离经典描述的流量模式。
公司优势
谱领生物专注于高端代谢组和基于稳定性同位素示踪的代谢流等技术研发和服务,是国家级研发项目承担单位。针对上述代谢流分析,谱领sh生物可提供 NMR/MS 同位素分布检测,以及代谢网络构建、通量估算与统计分析等检测和数据分析服务。公司拥有齐全的高质量技术平台体系、庞大的自建内源性化合物标准品色谱质谱数据库和数百种稳定性同位素化合物内标。持续的技术革新和产品迭代,以及快速研发能力,为您的高质量研究保驾护航!